

Le pentasaccharide actif de l’héparine
269
SO,H
OH
O
OH
OH
HS03NH
HS0,-OCH,
17.12
lente la protéine AT III à de l’agarose activé au bromure de cyanogène (voir le
paragraphe 10.4)[6]. On pratique ce couplage en présence d’un excès d’héparine
pour protéger les sites de AT III impliqués dans la reconnaissance de l’héparine.
Si on fait passer au travers d’une colonne de cet absorbant agarose-AT III une
solution d’héparine dans NaCl 0,2 M, au pH 7.5 (donc sous forme sel de sodium),
on constate que l’héparine est retenue. On peut dissocier cette combinaison en forçant la concentration saline de l’éluant (0,2 M -+ 3 M). Des expériences similaires
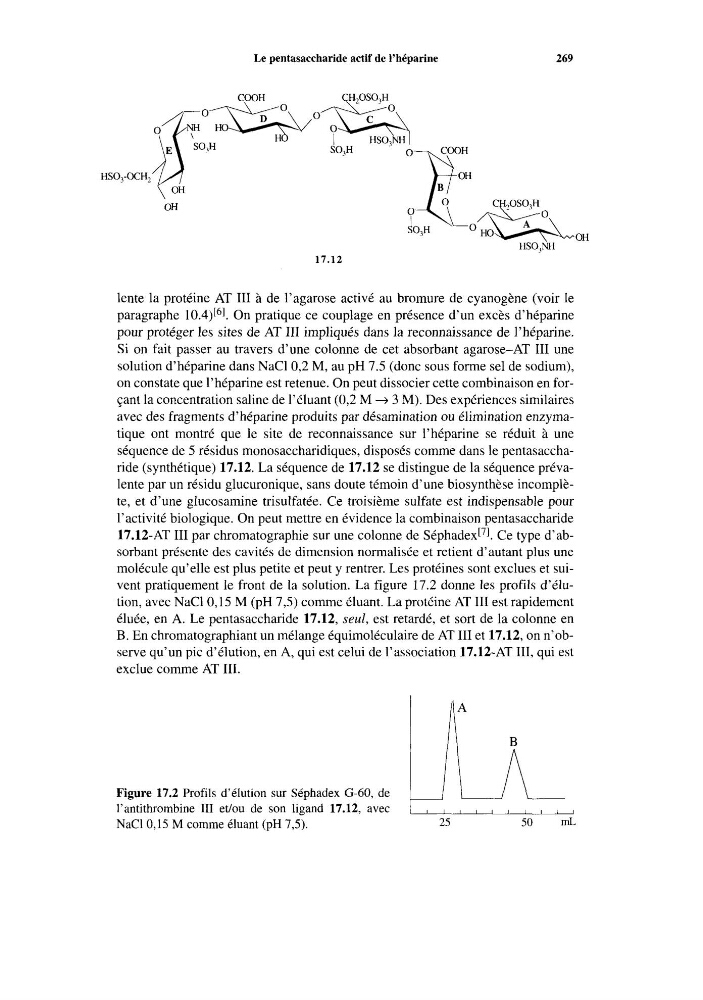
avec des fragments d’héparine produits par désamination ou élimination enzymatique ont montré que le site de reconnaissance sur l’héparine se réduit à une
séquence de 5 résidus monosaccharidiques, disposés comme dans le pentasaccharide (synthétique) 17.12. La séquence de 17.12 se distingue de la séquence prévalente par un résidu glucuronique, sans doute témoin d’une biosynthèse incomplète, et d’une glucosamine trisulfatée. Ce troisième sulfate est indispensable pour
l’activité biologique. On peut mettre en évidence la combinaison pentasaccharide
17.12-AT III par chromatographie sur une colonne de Séphade~[~]. Ce type d’absorbant présente des cavités de dimension normalisée et retient d’autant plus une
molécule qu’elle est plus petite et peut y rentrer. Les protéines sont exclues et suivent pratiquement le front de la solution. La figure 17.2 donne les profils d’élution, avec NaCl O, 15 M (pH 7 5 ) comme éluant. La protéine AT III est rapidement
éluée, en A. Le pentasaccharide 17.12, seul, est retardé, et sort de la colonne en
B. En chromatographiant un mélange équimoléculaire de AT III et 17.12, on n’observe qu’un pic d’élution, en A, qui est celui de l’association 17.12-AT III, qui est
exclue comme AT III.
Figure 17.2 Profils d’élution sur Séphadex G-60, de
l’antithrombine III etlou de son ligand 17.12, avec
NaCl 0,15 M comme éluant (pH 7,5).
25
50
mL