

PERMÉABILITÉ ET EXCITABILITÉ CELLULAIRES
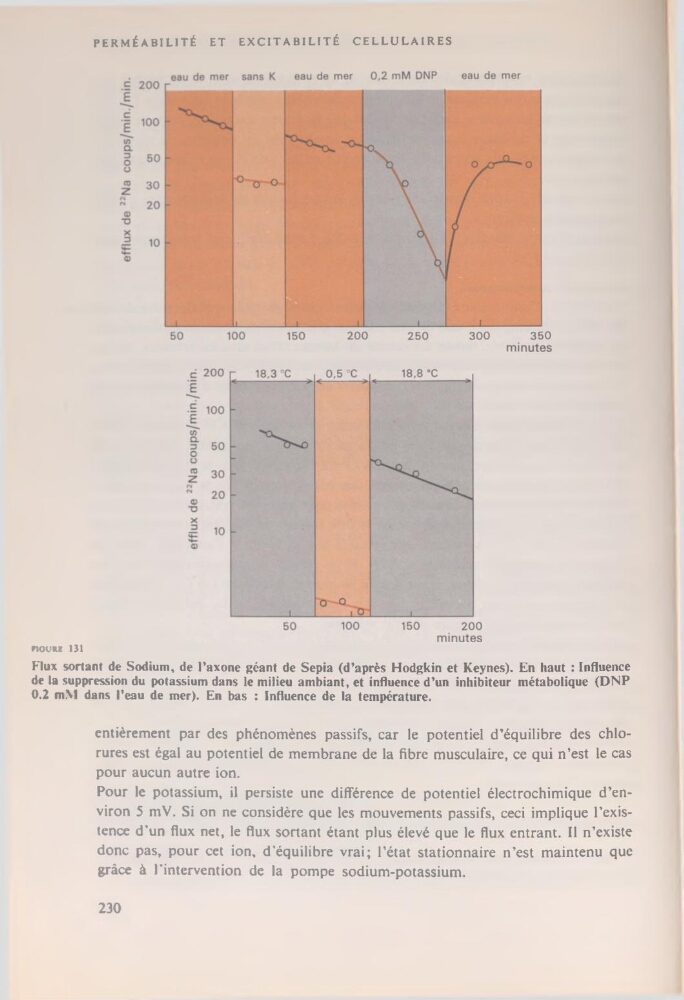
FIGURE 131
Flux sortant de Sodium, de l’axone géant de Sepia (d’après Hodgkin et Keynes). En haut : Influence
de la suppression du potassium dans le milieu ambiant, et influence d’un inhibiteur métabolique (DNP
0.2 mM dans l’eau de mer). En bas : Influence de la température.
entièrement par des phénomènes passifs, car le potentiel d’équilibre des chlorures est égal au potentiel de membrane de la fibre musculaire, ce qui n’est le cas
pour aucun autre ion.
Pour le potassium, il persiste une différence de potentiel électrochimique d’environ 5 mV. Si on ne considère que les mouvements passifs, ceci implique l’existence d'un flux net, le flux sortant étant plus élevé que le flux entrant. Il n’existe
donc pas, pour cet ion, d’équilibre vrai; l’état stationnaire n’est maintenu que
grâce à l'intervention de la pompe sodium-potassium.
230