

Philippe GROS L'espace dans les modèles de dynamique des populations
28
• Remarque sur la modélisation des effets de mouvements de portées différentes.
* Il est désormais clair que l'on nomme "structures spatiales" des hétérogénéités qui présentent, à une
échelle d'observation donnée, un certain degré de régularité ; on a aussi montré que pour explorer
"l'ontogénie de la structuration", une voie d'approche est l'étude du devenir d'une perturbation d'un
ensemble homogène, et l'identification des conditions de son évolution vers un "pattern". Suivant ce point
de vue, un paradigme morphogénétique classique est le couplage diffusif de l'interaction {stimulation ×
inhibition}, dans lequel l'efficacité de propagation de la seconde est supérieure à celle de la première. On
a considéré dans ce cadre des processus dont l'effet instantané est local, i.e., qui impliquent des individus
spatialement proches les uns des autres ; rappelons que ces individus appartiennent à différentes
populations : on s'est intéressé à des systèmes formés de deux populations qui réagissent entre elles.
On peut aussi s'interroger sur la capacité que possèderait une population à développer des inhomogénéités
spatiales "modélisables" par des mécanismes diffusionnels, sans faire intervenir d'interactions avec
d'autres espèces (prédation, compétition, ...). Une suggestion en ce sens a été avancée par D.S. Cohen &
J.D. Murray 47 , fondée sur le concept de diffusion généralisée (l'idée sous-jacente est de définir l'équation de
bilan en tenant compte des gradients nécessaires au maintien des hétérogénéités spatiales, e.g., ceux
engendrés par la "pression démographique"). Plus simplement, on peut obtenir un résultat formellement
comparable en considérant que la dynamique de la densité spatiale ν(x, t) est régie par des gradients de
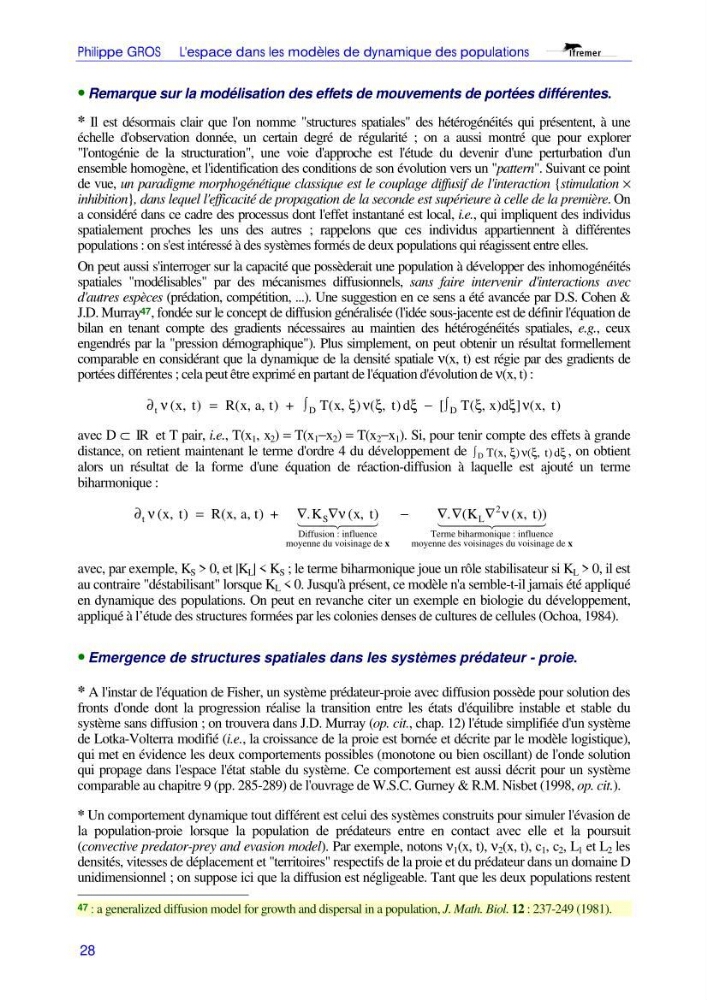
portées différentes ; cela peut être exprimé en partant de l'équation d'évolution de ν(x, t) :
∂ ν
ξ ν ξ
ξ
ξ
ξ ν
t
x
x a t
T x
d
T x d
x
t
R
+
t
[
t
D
D
( , )
( , , )
( , ) ( , )
( , ) ] ( , )
=
∫
− ∫
avec D ⊂ IR et T pair, i.e., T(x 1 , x 2 ) = T(x 1 −x 2 ) = T(x 2 −x 1 ). Si, pour tenir compte des effets à grande
distance, on retient maintenant le terme d'ordre 4 du développement de ∫ D
t
T x
d
( , ) ( , )
ξ ν ξ
ξ , on obtient
alors un résultat de la forme d'une équation de réaction-diffusion à laquelle est ajouté un terme
biharmonique :
∂ ν
ν
t
S
L
x
x a t
K
x
K
x
t
R
+
t
t
Diffusion : influence
moyenne du voisinage de
Terme biharmonique : influence
moyenne des voisinages du voisinage de
( , )
( , , )
.
( , )
. (
( , ))
=
∇ ∇ν
−
∇ ∇
∇
x
x
1 2
4 4
3
44
1
2
44 4
3
444
2
avec, par exemple, K S > 0, et |K L | < K S ; le terme biharmonique joue un rôle stabilisateur si K L > 0, il est
au contraire "déstabilisant" lorsque K L < 0. Jusqu'à présent, ce modèle n'a semble-t-il jamais été appliqué
en dynamique des populations. On peut en revanche citer un exemple en biologie du développement,
appliqué à l’étude des structures formées par les colonies denses de cultures de cellules (Ochoa, 1984).
• Emergence de structures spatiales dans les systèmes prédateur - proie.
* A l'instar de l'équation de Fisher, un système prédateur-proie avec diffusion possède pour solution des
fronts d'onde dont la progression réalise la transition entre les états d'équilibre instable et stable du
système sans diffusion ; on trouvera dans J.D. Murray (op. cit., chap. 12) l'étude simplifiée d'un système
de Lotka-Volterra modifié (i.e., la croissance de la proie est bornée et décrite par le modèle logistique),
qui met en évidence les deux comportements possibles (monotone ou bien oscillant) de l'onde solution
qui propage dans l'espace l'état stable du système. Ce comportement est aussi décrit pour un système
comparable au chapitre 9 (pp. 285-289) de l'ouvrage de W.S.C. Gurney & R.M. Nisbet (1998, op. cit.).
* Un comportement dynamique tout différent est celui des systèmes construits pour simuler l'évasion de
la population-proie lorsque la population de prédateurs entre en contact avec elle et la poursuit
(convective predator-prey and evasion model). Par exemple, notons ν 1 (x, t), ν 2 (x, t), c 1 , c 2 , L 1 et L 2 les
densités, vitesses de déplacement et "territoires" respectifs de la proie et du prédateur dans un domaine D
unidimensionnel ; on suppose ici que la diffusion est négligeable. Tant que les deux populations restent
47 : a generalized diffusion model for growth and dispersal in a population, J. Math. Biol. 12 : 237-249 (1981).