

3 - Relations irophiques et évaluation des ressources plurispécifiques
15
La disponibilité écologique résulte de plusieurs caractéristiques de l'écologie de
la proie. Un organisme fouisseur ou une espèce pélagique ne sont pas accessibles à un
prédateur vivant sur le fond : la valeur 0 lui sera attribuée. Par contre, on accordera la
valeur 1 à un organisme épibenthique. La convenance de taille reflétera l'observation
selon laquelle la taille des proies augmente avec celle des prédateurs et le rôle joué par
ce phénomène dans les relations prédateurs/proies chez les poissons. Ursin (1973) a
retenu une fonction de distribution log-normale pour représenter la relation entre les
poids respectifs des proies et de leurs prédateurs ; ce choix est en bon accord avec les
observations (Dekker 1984). Le chevauchement mesure la superposition des aires de
distribution des populations de prédateurs et de proies (Gislason and Helgason 1985).
L'avantage de cette formulation générale est que les différents paramètres ont une
signification biologique et peuvent, au moins en principe, être estimés en dehors du
modèle de base.
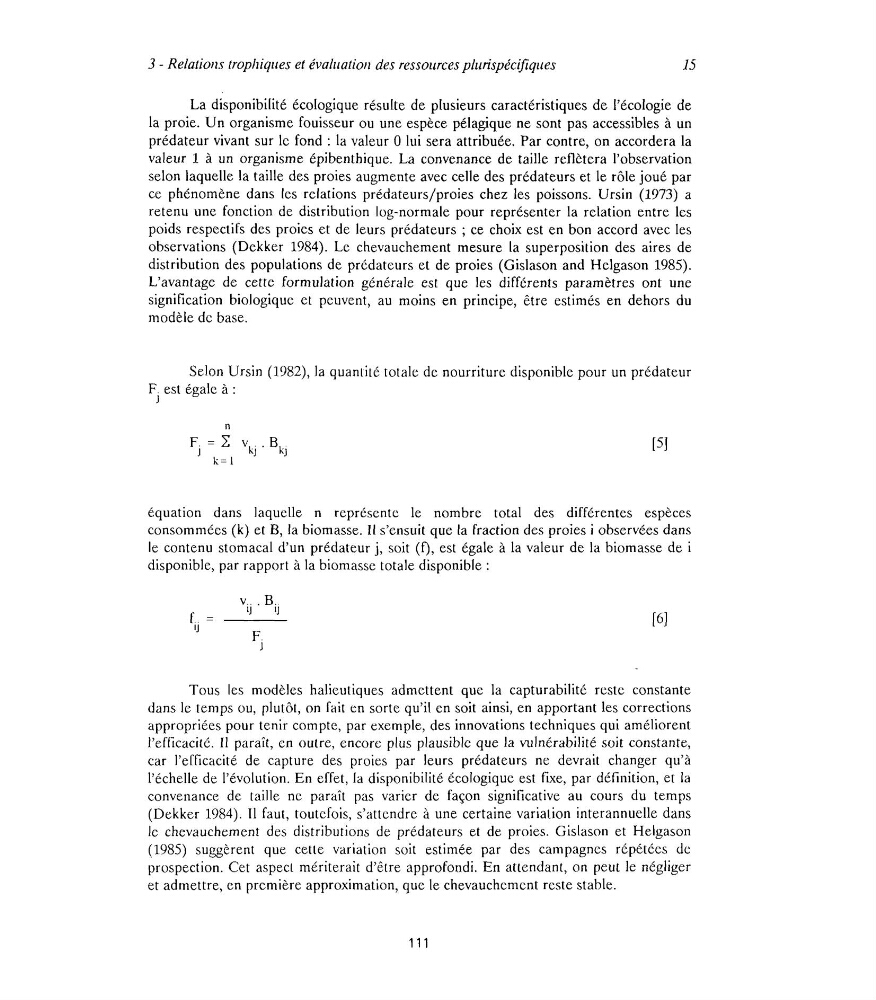
Selon Ursin (1982), la quantité totale de nourriture disponible pour un prédateur
F est égale à :
F. = S V...B..
[5]
j
kj
kj
i J
k=l
équation dans laquelle n représente le nombre total des différentes espèces
consommées (k) et B, la biomasse. Il s'ensuit que la fraction des proies i observées dans
le contenu stomacal d'un prédateur j, soit (f), est égale à la valeur de la biomasse de i
disponible, par rapport à la biomasse totale disponible :
v.. .B.
= ^-^
[6]
F
J
u
Tous les modèles halieutiques admettent que la capturabilité reste constante
dans le temps ou, plutôt, on fait en sorte qu'il en soit ainsi, en apportant les corrections
appropriées pour tenir compte, par exemple, des innovations techniques qui améliorent
l'efficacité. Il paraît, en outre, encore plus plausible que la vulnérabilité soit constante,
car l'efficacité de capture des proies par leurs prédateurs ne devrait changer qu'à
l'échelle de l'évolution. En effet, la disponibilité écologique est fixe, par définition, et la
convenance de taille ne paraît pas varier de façon significative au cours du temps
(Dekker 1984). Il faut, toutefois, s'attendre à une certaine variation interannuelle dans
le chevauchement des distributions de prédateurs et de proies. Gislason et Helgason
(1985) suggèrent que cette variation soit estimée par des campagnes répétées de
prospection. Cet aspect mériterait d'être approfondi. En attendant, on peut le négliger
et admettre, en première approximation, que le chevauchement reste stable.
111