

- 81 -
Chapitre III : Gestion et Surveillance
2. Indices d’exploitation
Mortalité naturelle
Le paramètre M a été calculé à partir de l’équation empirique proposée par Djabali et coll (1993),
et il est de l’ordre de 0,33/an.
L’estimation du taux de mortalité naturelle (M) n’est pas aisée, et il est souvent impossible
d’obtenir des mesures directes et exactes.
Chali-Chabane (1988) explique qu’en plus de la prédation, les facteurs externes du milieu, le régime
alimentaire et le mode de vie de l’espèce, l’effet des variations de la température est ressenti durant
les phases critiques du développement, dont la baisse peut être fatale pour les jeunes.
Mortalité totale
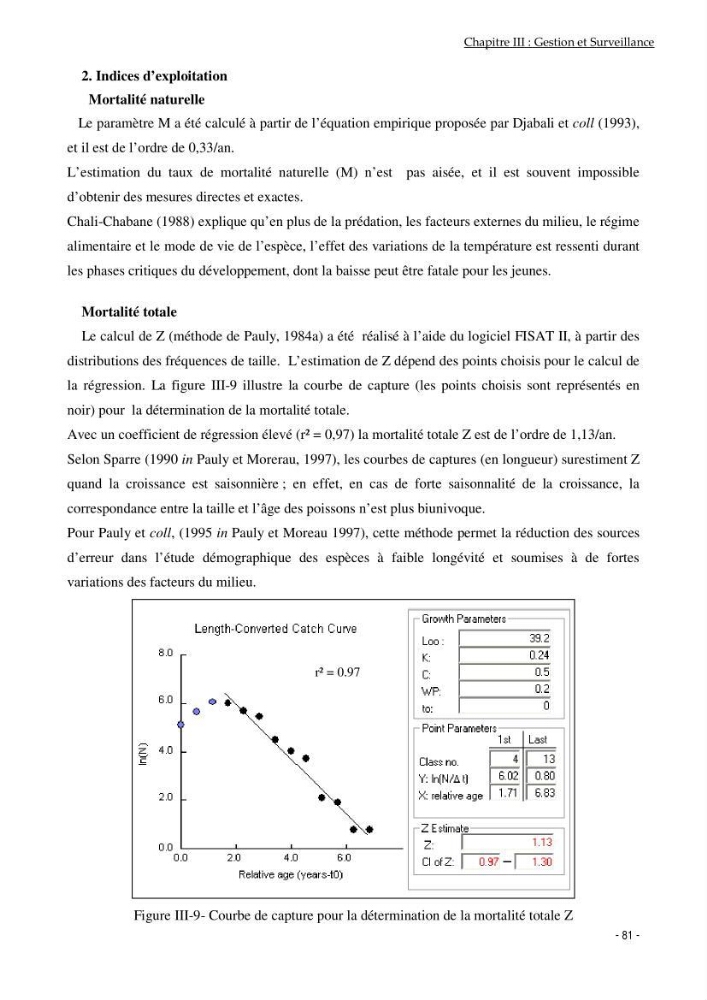
Le calcul de Z (méthode de Pauly, 1984a) a été réalisé à l’aide du logiciel FISAT II, à partir des
distributions des fréquences de taille. L’estimation de Z dépend des points choisis pour le calcul de
la régression. La figure III-9 illustre la courbe de capture (les points choisis sont représentés en
noir) pour la détermination de la mortalité totale.
Avec un coefficient de régression élevé (r² = 0,97) la mortalité totale Z est de l’ordre de 1,13/an.
Selon Sparre (1990 in Pauly et Morerau, 1997), les courbes de captures (en longueur) surestiment Z
quand la croissance est saisonnière ; en effet, en cas de forte saisonnalité de la croissance, la
correspondance entre la taille et l’âge des poissons n’est plus biunivoque.
Pour Pauly et coll, (1995 in Pauly et Moreau 1997), cette méthode permet la réduction des sources
d’erreur dans l’étude démographique des espèces à faible longévité et soumises à de fortes
variations des facteurs du milieu.
Figure III-9- Courbe de capture pour la détermination de la mortalité totale Z
r² = 0.97