

Chapitre deuxième : Détermination des paramètres de croissance et d’exploitation
28
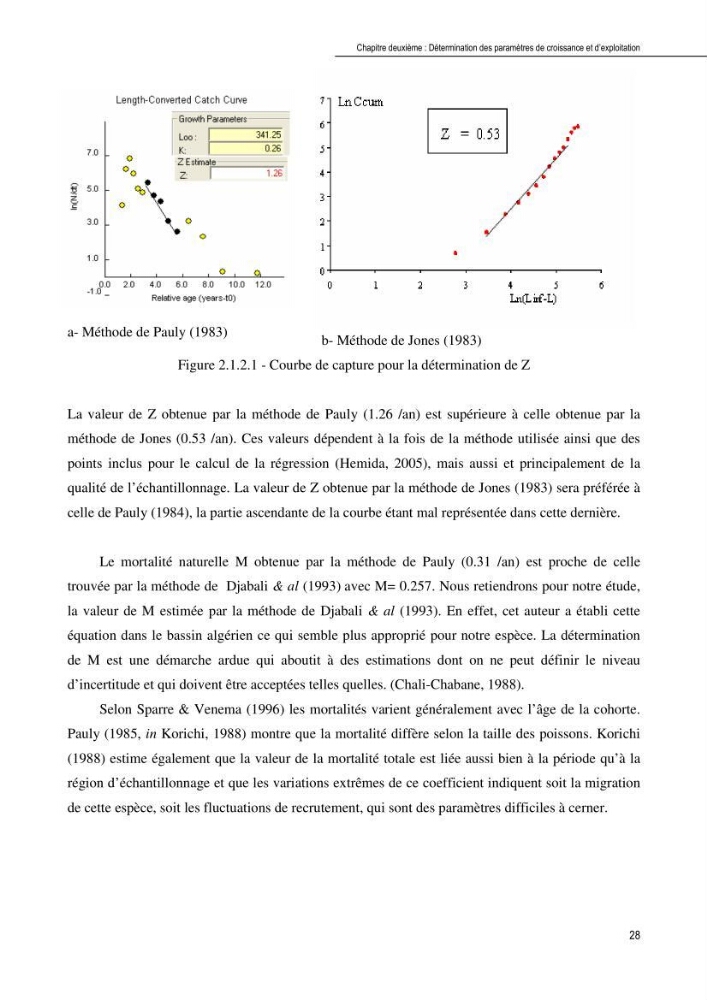
a- Méthode de Pauly (1983)
b- Méthode de Jones (1983)
Figure 2.1.2.1 - Courbe de capture pour la détermination de Z
La valeur de Z obtenue par la méthode de Pauly (1.26 /an) est supérieure à celle obtenue par la
méthode de Jones (0.53 /an). Ces valeurs dépendent à la fois de la méthode utilisée ainsi que des
points inclus pour le calcul de la régression (Hemida, 2005), mais aussi et principalement de la
qualité de l’échantillonnage. La valeur de Z obtenue par la méthode de Jones (1983) sera préférée à
celle de Pauly (1984), la partie ascendante de la courbe étant mal représentée dans cette dernière.
Le mortalité naturelle M obtenue par la méthode de Pauly (0.31 /an) est proche de celle
trouvée par la méthode de Djabali & al (1993) avec M= 0.257. Nous retiendrons pour notre étude,
la valeur de M estimée par la méthode de Djabali & al (1993). En effet, cet auteur a établi cette
équation dans le bassin algérien ce qui semble plus approprié pour notre espèce. La détermination
de M est une démarche ardue qui aboutit à des estimations dont on ne peut définir le niveau
d’incertitude et qui doivent être acceptées telles quelles. (Chali-Chabane, 1988).
Selon Sparre & Venema (1996) les mortalités varient généralement avec l’âge de la cohorte.
Pauly (1985, in Korichi, 1988) montre que la mortalité diffère selon la taille des poissons. Korichi
(1988) estime également que la valeur de la mortalité totale est liée aussi bien à la période qu’à la
région d’échantillonnage et que les variations extrêmes de ce coefficient indiquent soit la migration
de cette espèce, soit les fluctuations de recrutement, qui sont des paramètres difficiles à cerner.