

132
La perméabilité membranaire est sé/ect/ve : ainsi le D-glucose pénètre dans
la cellule et non le L-gîucose. il faut donc faire intewenir un récepteur specifique, qui serait une (ou plusieurs) proteine membranaire periphérique,
associée au transporteur précédent; on peut en effet inactiver ces proteines
réceptrices par des agents ne pénétrant pas dans la membrane (fig. 69).
3- Les électrolytes.
Leur entree dans la cellule est le plus souvent couplee a un mouvement
de sortie.
Elle est fonction de leur différence de potentiel chimique, comme les
substances précédentes, mais aussi de leur différence de potentiel electro—
chimique.
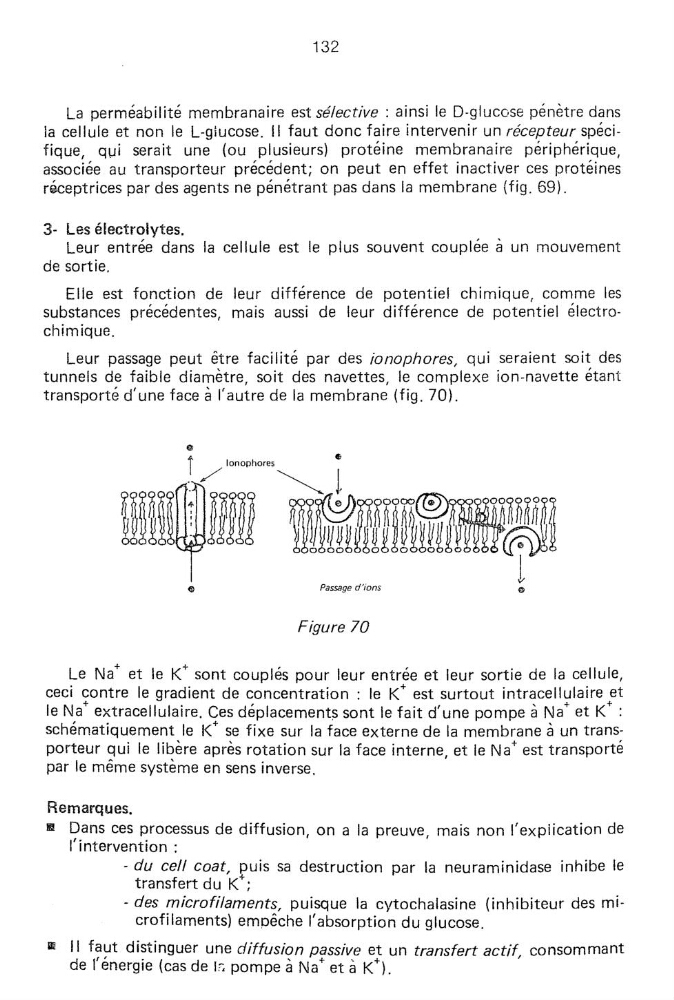
Leur passage peut être facilité par des ionophores, qui seraient soit des
tunnels de faible diametre, soit des navettes, le complexe ion-navette etant
transporte d'une face a l'autre de la membrane (fig. 70).
@
&
Î
/
lonophores
ΰ il
\
@
°
4—
@
0000
00
@@
i" "r’
…”
-
l
r
00
Elo C£äâ ää£
0
MO.v-!û @
_
l
@
Passaged‘zons
@
Figure 70
Le Na+ et le K+ sont couplés pour leur entrée et leur sortie de la cellule,
cecr
contre
le gradient de concentration : le K+ est surtout intracellulaire +et
.
,
_
,
\
+
le Na extracellulaire. C+es deplacements sont le fait d une pompe a Na et K :
schématiquement le K se fixe sur la face externe de la membraneà un transporteur gui
le libere apres rotation sur la face interne, et le Na+ est transporte
par le meme systeme en sens inverse,
Remarques.
&
ces processus de diffusion, on a la preuve, mais non l'explication de
l intervention :
-
du cell coat, puis
sa destruction par la neuraminidase inhibe le
transfert du K ;
—
des _micro/amentg, puisque la cytochalasine (inhibiteur des microfnlaments) empeche l'absorption du glucose.
@
il faut distinguer une diffusion passive et un transfert act/f, consommant
de l energie (cas de la pompe a l\la+ età K+),