

768 cinquième partie La diversité biologique à travers l’évolution
d’un groupe dont les membres présentent des caractéristiques
biologiques importantes communes. Or, les études phylogénétiques actuelles indiquent que des cœlomes et des pseudocœlomes sont apparus et disparus à maintes reprises au cours
de l’évolution des Animaux. Comme l’illustre cet exemple,
les grades ne correspondent pas nécessairement aux clades.
(Un clade est un groupe comprenant l’espèce ancestrale et
tous ses descendants.) Aussi, bien qu’il puisse être utile de
décrire des organismes et leurs caractéristiques selon qu’il
s’agit de Cœlomates ou de Pseudocœlomates, ces termes
doivent être interprétés avec prudence lorsqu’on tente de
comprendre l’histoire de l’évolution.
Les modes de développement
protostomien et deutérostomien
En se fondant sur certaines caractéristiques du développement
embryonnaire, il est possible de caractériser de nombreux
Animaux par l’un ou l’autre des deux modes de développement suivants : le développement protostomien et le
développement deutérostomien. On distingue généralement ces modes en fonction de la segmentation, de la formation du cœlome et de la destinée du blastopore.
La segmentation
Un grand nombre de Protostomiens se développent par segmentation spirale, c’est-à-dire que la division cellulaire se
fait en diagonale par rapport à l’axe vertical de l’embryon ; le
plan de division (ou l’orientation du fuseau mitotique) est
oblique par rapport à cet axe. Au stade à huit cellules de l’embryon, de petites cellules sont centrées au-dessus des sillons
séparant les plus grandes cellules (figure 32.9a, à gauche).
Par ailleurs, chez certains Protostomiens, ce type de division
appelée aussi segmentation déterminée définit très tôt le
sort de chaque cellule embryonnaire. Ainsi, si on prélève une
cellule d’un Protostomien (un escargot, par exemple) pendant
le stade à quatre cellules, cette cellule donnera naissance à
une masse de cellules correspondant à un quart d’embryon,
c’est-à-dire un embryon non viable auquel il manquera de
nombreuses parties.
Chez les Deutérostomiens, le mode de division est différent ; il est caractérisé par la segmentation radiaire chez
un grand nombre d’entre eux. Dans ce type de segmentation,
la division cellulaire se fait parallèlement ou perpendiculairement à l’axe vertical de l’embryon. Comme on peut l’observer au stade à huit cellules, les cellules sont bien alignées les
unes au-dessus des autres (figure 32.9a, à droite). La plupart
des Deutérostomiens se caractérisent également par une
segmentation indéterminée, ce qui signifie que chaque
cellule produite au début de la segmentation a la capacité de
devenir un embryon complet. Ainsi, si on sépare les cellules
de l’embryon d’un oursin au stade où celui-ci en possède
quatre, chacune pourra donner une larve normale. C’est
aussi la segmentation indéterminée du zygote humain qui
explique la formation des jumeaux monozygotes.
La formation du cœlome
Pendant la gastrulation, il se crée une structure en cul-de-sac,
une sorte de poche interne, l’archentéron, qui deviendra
le tube digestif de l’embryon (figure 32.9b). À mesure que le
Protostomien se constitue et que l’archentéron se développe,
le cœlome se forme à partir de fentes situées dans les masses de
mésoderme. Chez les Deutérostomiens, le mésoderme émerge
de la paroi de l’archentéron et sa cavité deviendra le cœlome.
La destinée du blastopore
Les deux modes de développement se distinguent également
par le sort du blastopore, c’est-à-dire l’ouverture qui aboutit
à la formation de l’archentéron pendant la gastrulation
(figure 32.9c). Chez la plupart des Animaux, une seconde
ouverture se forme, après le développement de l’archentéron,
à l’extrémité opposée du blastopore. Chez plusieurs espèces,
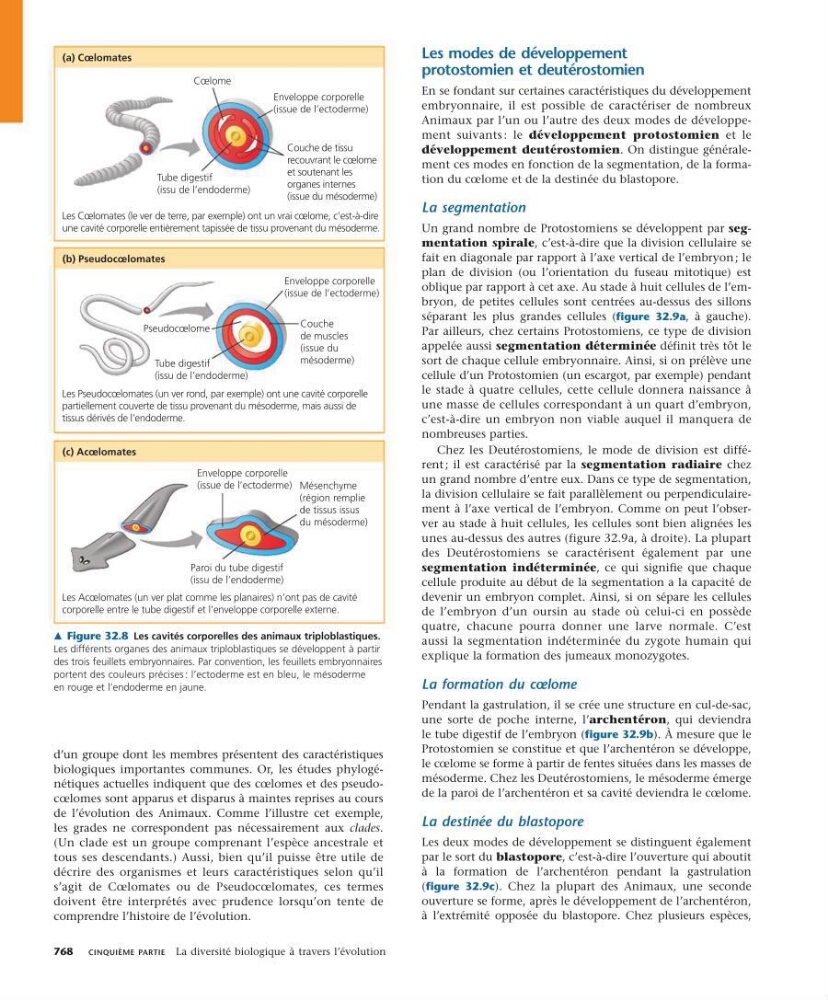
m Figure 32.8 Les cavités corporelles des animaux triploblastiques.
Les différents organes des animaux triploblastiques se développent à partir
des trois feuillets embryonnaires. Par convention, les feuillets embryonnaires
portent des couleurs précises : l’ectoderme est en bleu, le mésoderme
en rouge et l’endoderme en jaune.
(a) Cœlomates
(b) Pseudocœlomates
(c) Acœlomates
Couche de tissu
recouvrant le cœlome
et soutenant les
organes internes
(issue du mésoderme)
Cœlome
Enveloppe corporelle
(issue de l’ectoderme) Mésenchyme
(région remplie
de tissus issus
du mésoderme)
Paroi du tube digestif
(issu de l’endoderme)
Enveloppe corporelle
(issue de l’ectoderme)
Enveloppe corporelle
(issue de l’ectoderme)
Couche
de muscles
(issue du
mésoderme)
Tube digestif
(issu de l’endoderme)
Tube digestif
(issu de l’endoderme)
Pseudocœlome
Les Acœlomates (un ver plat comme les planaires) n’ont pas de cavité
corporelle entre le tube digestif et l’enveloppe corporelle externe.
Les Pseudocœlomates (un ver rond, par exemple) ont une cavité corporelle
partiellement couverte de tissu provenant du mésoderme, mais aussi de
tissus dérivés de l’endoderme.
Les Cœlomates (le ver de terre, par exemple) ont un vrai cœlome, c’est-à-dire
une cavité corporelle entièrement tapissée de tissu provenant du mésoderme.