

650 cinquième partie La diversité biologique à travers l’évolution
peut se fixer à une autre bactérie procaryote (receveuse) et lui
injecter le fragment d’ADN provenant de la première cellule
(donneuse). Si une partie de cet ADN est ensuite intégrée
dans le chromosome de la cellule receveuse par recombinaison de l’ADN, une cellule recombinée sera alors créée.
La conjugaison et les plasmides
La conjugaison est un processus de transfert d’ADN entre
deux cellules procaryotes (habituellement de la même espèce)
temporairement liées. Le transfert d’ADN entre deux bactéries est toujours unidirectionnel : une cellule donne de l’ADN,
alors qu’une autre la reçoit. Le mécanisme le mieux compris
est celui qu’emprunte E. coli, et nous consacrerons donc le
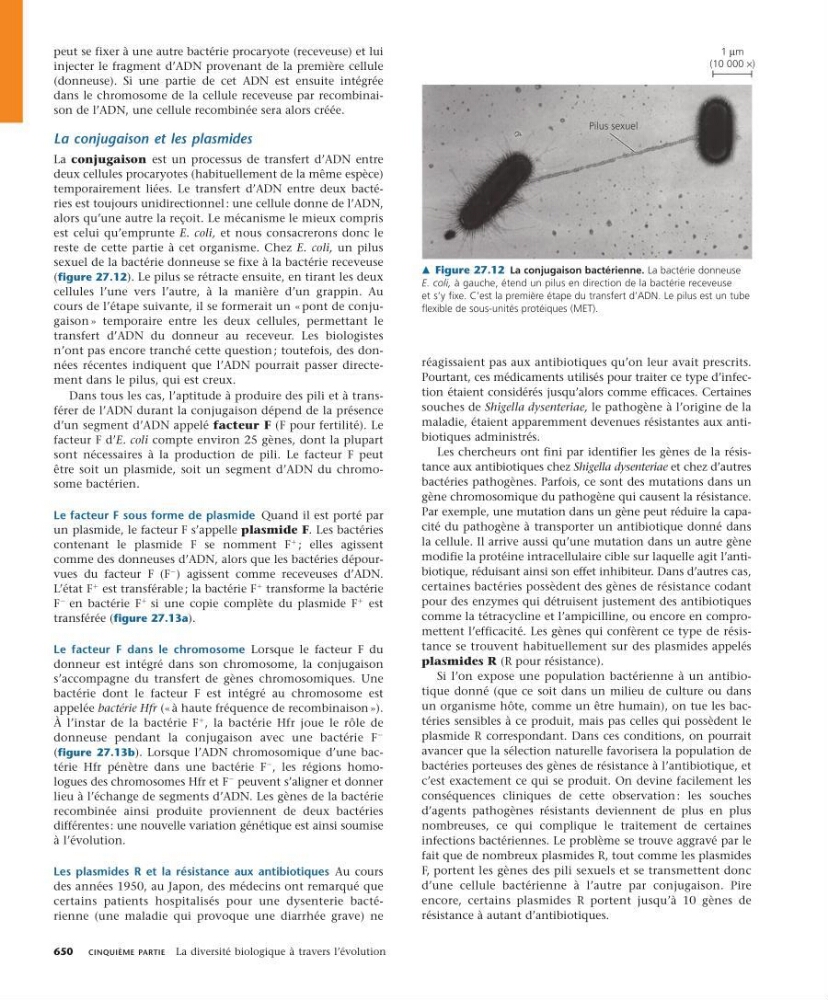
reste de cette partie à cet organisme. Chez E. coli, un pilus
sexuel de la bactérie donneuse se fixe à la bactérie receveuse
(figure 27.12). Le pilus se rétracte ensuite, en tirant les deux
cellules l’une vers l’autre, à la manière d’un grappin. Au
cours de l’étape suivante, il se formerait un « pont de conjugaison » temporaire entre les deux cellules, permettant le
transfert d’ADN du donneur au receveur. Les biologistes
n’ont pas encore tranché cette question ; toutefois, des données récentes indiquent que l’ADN pourrait passer directement dans le pilus, qui est creux.
Dans tous les cas, l’aptitude à produire des pili et à transférer de l’ADN durant la conjugaison dépend de la présence
d’un segment d’ADN appelé facteur F (F pour fertilité). Le
facteur F d’E. coli compte environ 25 gènes, dont la plupart
sont nécessaires à la production de pili. Le facteur F peut
être soit un plasmide, soit un segment d’ADN du chromosome bactérien.
Le facteur F sous forme de plasmide Quand il est porté par
un plasmide, le facteur F s’appelle plasmide F. Les bactéries
contenant le plasmide F se nomment F
1
; elles agissent
comme des donneuses d’ADN, alors que les bactéries dépourvues du facteur F (F
2
) agissent comme receveuses d’ADN.
L’état F
1
est transférable ; la bactérie F
1
transforme la bactérie
F
2
en bactérie F
1
si une copie complète du plasmide F
1
est
transférée (figure 27.13a).
Le facteur F dans le chromosome Lorsque le facteur F du
donneur est intégré dans son chromosome, la conjugaison
s’accompagne du transfert de gènes chromosomiques. Une
bactérie dont le facteur F est intégré au chromosome est
appelée bactérie Hfr (« à haute fréquence de recombinaison »).
À l’instar de la bactérie F
1
, la bactérie Hfr joue le rôle de
donneuse pendant la conjugaison avec une bactérie F
2
(figure 27.13b). Lorsque l’ADN chromosomique d’une bactérie Hfr pénètre dans une bactérie F
2
, les régions homologues des chromosomes Hfr et F
2
peuvent s’aligner et donner
lieu à l’échange de segments d’ADN. Les gènes de la bactérie
recombinée ainsi produite proviennent de deux bactéries
différentes : une nouvelle variation génétique est ainsi soumise
à l’évolution.
Les plasmides r et la résistance aux antibiotiques Au cours
des années 1950, au Japon, des médecins ont remarqué que
certains patients hospitalisés pour une dysenterie bactérienne (une maladie qui provoque une diarrhée grave) ne
réagissaient pas aux antibiotiques qu’on leur avait prescrits.
Pourtant, ces médicaments utilisés pour traiter ce type d’infection étaient considérés jusqu’alors comme efficaces. Certaines
souches de Shigella dysenteriae, le pathogène à l’origine de la
maladie, étaient apparemment devenues résis tantes aux antibiotiques administrés.
Les chercheurs ont fini par identifier les gènes de la résistance aux antibio tiques chez Shigella dysenteriae et chez d’autres
bactéries pathogènes. Parfois, ce sont des mutations dans un
gène chromoso mique du pathogène qui causent la résistance.
Par exemple, une mutation dans un gène peut réduire la capacité du pathogène à transporter un antibiotique donné dans
la cellule. Il arrive aussi qu’une mutation dans un autre gène
modifie la protéine intracellulaire cible sur laquelle agit l’antibio tique, réduisant ainsi son effet inhibiteur. Dans d’autres cas,
certaines bactéries possèdent des gènes de résistance codant
pour des enzymes qui détruisent justement des antibiotiques
comme la tétracycline et l’ampicilline, ou encore en compromettent l’efficacité. Les gènes qui confèrent ce type de résistance se trouvent habituellement sur des plas mides appelés
plasmides R (R pour résistance).
Si l’on expose une population bactérienne à un antibiotique donné (que ce soit dans un milieu de culture ou dans
un organisme hôte, comme un être humain), on tue les bactéries sensibles à ce produit, mais pas celles qui possèdent le
plasmide R correspondant. Dans ces conditions, on pourrait
avancer que la sélection naturelle favorisera la population de
bactéries porteuses des gènes de résistance à l’antibiotique, et
c’est exactement ce qui se produit. On devine facilement les
conséquences cliniques de cette observation : les souches
d’agents pathogènes résistants deviennent de plus en plus
nombreuses, ce qui complique le traitement de certaines
infections bactériennes. Le problème se trouve aggravé par le
fait que de nombreux plasmides R, tout comme les plasmides
F, portent les gènes des pili sexuels et se transmettent donc
d’une cellule bactérienne à l’autre par conjugaison. Pire
encore, certains plasmides R portent jusqu’à 10 gènes de
résistance à autant d’antibiotiques.
Pilus sexuel
1 Rm
(10 000 w)
m Figure 27.12 La conjugaison bactérienne. La bactérie donneuse
E. coli, à gauche, étend un pilus en direction de la bactérie receveuse
et s’y fixe. C’est la première étape du transfert d’ADN. Le pilus est un tube
flexible de sous-unités protéiques (MET).