

564 quatrième partie Les mécanismes de l’évolution
avantageux dans une population, le flux génétique et la dérive génétique
peuvent aussi diminuer leur fréquence ou augmenter celle des allèles
dommageables. Seule la sélection naturelle produit constamment une
augmentation de la fréquence des allèles qui améliorent la survie ou
la reproduction. La sélection naturelle est donc le seul mécanisme qui
entraîne constamment une évolution adaptative. 3. Les trois modes de
sélection naturelle (la sélection directionnelle, la sélection stabilisante
et la sélection divergente) se définissent sur le plan des avantages sélectifs
de différents phénotypes, et non en termes de différents génotypes. Par
conséquent, le type de sélection découlant de l’avantage hétérozygote
dépend du phénotype des hétérozygotes. Dans cette question, comme les
individus hétérozygotes ont un phénotype plus extrême que tout homozygote, l’avantage hétérozygote représente une sélection directionnelle.
4. Dans des conditions prolongées de faible taux d’oxygène, certains des
globules rouges d’un hétérozygote peuvent devenir falciformes, ce qui
occasionne divers symptômes de gravité variable (voir le chapitre 14).
Ces problèmes ne se produisent pas chez des individus qui ont deux allèles
d’hémoglobine normale, ce qui laisse penser qu’il peut y avoir une sélection défavorisant les hétérozygotes dans les régions exemptes de paludisme
(où l’avantage hétérozygote ne se produit pas). Cependant, comme
les hétérozygotes sont en bonne santé dans la plupart des conditions,
il est peu probable que la sélection à leur encontre soit forte.
Questions du résumé des concepts clés
23.1 Les biologistes estiment la diversité génétique et la diversité nucléotidique essentiellement pour déterminer si des populations présentent
une variation génétique suffisante pour que l’évolution soit possible.
La diversité génétique indique dans quelle mesure les individus diffèrent
au niveau du gène entier, tandis que la diversité nucléotidique donne
une mesure de la variation génétique au niveau de la séquence de l’ADN.
23.2 Non, ce n’est pas un exemple de raisonnement circulaire. Calculer
p et q à partir des fréquences génotypiques observées ne suppose pas que
ces fréquences génotypiques doivent être dans un équilibre de HardyWeinberg. Pensons à une population composée de 195 individus du
génotype AA, de 10 individus du génotype Aa, et de 195 individus du
génotype aa. Calculer p et q à partir de ces valeurs donne p 5 q 5 0,5.
Selon l’équation de Hardy-Weinberg, les fréquences d’équilibre prévues
sont p
2 5 0,25 pour le génotype AA, 2pq 5 0,5 pour le génotype Aa, et
q
2 5 0,25 pour le génotype aa. Comme il y a 400 individus dans la
population, ces fréquences génotypiques prévues indiquent qu’il devrait
y avoir 100 individus AA, 200 individus Aa et 100 individus aa – données
qui diffèrent grandement des valeurs que nous avons utilisées pour calculer p et q. 23.3 Il est peu probable que de telles populations évoluent
de manière similaire. Comme leurs environnements sont très différents,
les allèles favorisés par la sélection naturelle différeraient probablement
entre les deux populations. La dérive génétique peut avoir d’importants
effets sur chacune de ces petites populations, mais les changements
de fréquences alléliques qu’elle entraîne sont imprévisibles ; il est donc
improbable que les deux populations connaissent une évolution similaire.
Enfin, comme ces populations sont isolées géographiquement, le flux
génétique entre elles sera probablement inexistant ou très faible et risque
peu de les faire évoluer dans le même sens. 23.4 Les femelles de ces
espèces sont probablement plus grosses et plus colorées que les mâles ;
leur ornementation est probablement plus élaborée (par exemple, une
caractéristique morphologique spectaculaire, comme la queue du paon)
et elles sont susceptibles d’adopter des comportements destinés à attirer
les mâles ou à empêcher leurs rivales d’obtenir des partenaires.
éValUatIon
1. e ; 2. c ; 3. e ; 4. b ; 5. a ; 6. d ;
7. Bien que la sélection naturelle puisse améliorer l’adéquation entre
les organismes et leur environnement, l’évolution peut aussi entraîner
l’apparition d’imperfections chez ces organismes. La principale raison de
cette situation est que l’évolution ne produit pas les organismes à partir
de rien pour qu’ils s’adaptent à leur environnement et à leur mode de vie.
Elle travaille plutôt selon un processus de descendance avec modification :
les organismes héritent de la structure ancestrale et celle-ci se modifie au
fil du temps sous l’effet de la sélection naturelle. Il s’ensuit, par exemple,
qu’un mammifère volant comme la chauve-souris possède des ailes dont
la structure est imparfaite. Ces ailes témoignent plutôt des modifications
subies par les membres antérieurs que les ancêtres des chauves-souris
utilisaient pour marcher. Les imperfections que présentent les organismes
résultent de diverses contraintes, notamment d’un manque de variation
génétique pour le caractère génétique en cause. Ces imperfections
résultent également du fait que les adaptations sont souvent le fruit
de compromis (puisque les organismes doivent effectuer un certain
nombre de choses et que la conception « parfaite » convenant à la réalisation d’une fonction risque de compromettre l’efficacité d’une autre activité).
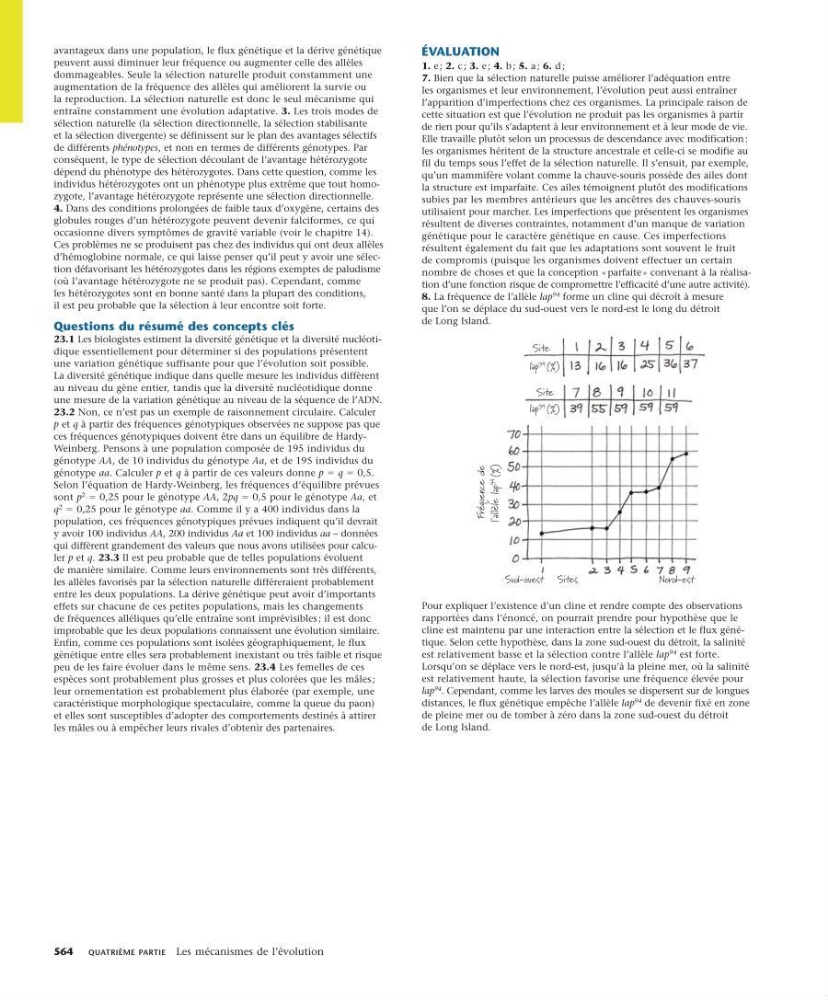
8. La fréquence de l’allèle lap
94 forme un cline qui décroît à mesure
que l’on se déplace du sud-ouest vers le nord-est le long du détroit
de Long Island.
Site
lap
94
(%)
Site
lap
94
(%)
Sud-ouest Sites
Nord-est
Fréquence de
l'allèle lap
94
(%)
Pour expliquer l’existence d’un cline et rendre compte des observations
rapportées dans l’énoncé, on pourrait prendre pour hypothèse que le
cline est maintenu par une interaction entre la sélection et le flux génétique. Selon cette hypothèse, dans la zone sud-ouest du détroit, la salinité
est relativement basse et la sélection contre l’allèle lap
94 est forte.
Lorsqu’on se déplace vers le nord-est, jusqu’à la pleine mer, où la salinité
est relativement haute, la sélection favorise une fréquence élevée pour
lap
94
. Cependant, comme les larves des moules se dispersent sur de longues
distances, le flux génétique empêche l’allèle lap
94 de devenir fixé en zone
de pleine mer ou de tomber à zéro dans la zone sud-ouest du détroit
de Long Island.