

chapitre 21 Les génomes et leur évolution 511
non enzymatique qui intervient dans la production du lait
chez les Mammifères. Les séquences des acides aminés et les
structures tridimensionnelles de ces deux protéines sont très
semblables. On trouve les deux gènes chez les Mammifères,
alors que chez les Oiseaux seul le lysozyme est présent. Ces
constatations portent à croire que, quelque temps après la
séparation des lignées aboutissant aux Mammifères et aux
Oiseaux, le gène du lysozyme a subi une duplication au sein
de la lignée des Mammifères, mais pas dans celle des Oiseaux.
Par la suite, une copie du gène du lysozyme dupliqué a évolué vers un gène codant pour l’a-lactalbumine, une protéine
de fonction totalement différente.
Les réarrangements de parties de gènes :
la duplication d’exons et le brassage d’exons
Le réarrangement de séquences d’ADN existantes dans les
gènes a également contribué à l’évolution du génome. La présence d’introns dans la plupart des gènes d’Eucaryotes multicellulaires peut avoir favorisé l’évolution de protéines nouvelles
et potentiellement utiles en facilitant la duplication et le repositionnement des exons dans le génome. Au chapitre 17, vous
avez vu qu’un exon code souvent pour un domaine, région
structurale ou fonctionnelle distincte d’une protéine.
Nous avons déjà vu qu’un enjambement inégal au cours
de la méiose peut conduire à la duplication d’un gène sur
un chromosome et à sa perte par le chromosome homologue (voir la figure 21.13). Selon un processus semblable,
un exon donné dans un gène peut subir une duplication
dans un chromosome et une délétion dans l’autre. Le gène
dont l’exon a été dupliqué pourrait coder pour une protéine
contenant une deuxième copie du domaine encodé. Cette
modification de la structure de la protéine pourrait renforcer sa fonction en augmentant sa stabilité, en amplifiant
sa capacité à se lier à un ligand particulier ou en altérant
une autre propriété quelconque. Un bon nombre de gènes
codant pour des protéines possèdent de multiples copies
d’exons apparentés, qui sont probablement apparus par
duplication suivie d’une divergence. Le gène qui code pour
le collagène, protéine de la matrice extracellulaire, en est un
bon exemple. Le collagène est une protéine de structure
dont la séquence d’acides aminés est très répétitive, ce qui
se reflète dans le schéma répétitif des exons dans le gène
du collagène.
On peut également imaginer le mélange occasionnel et
l’appariement de différents exons soit dans un gène, soit entre
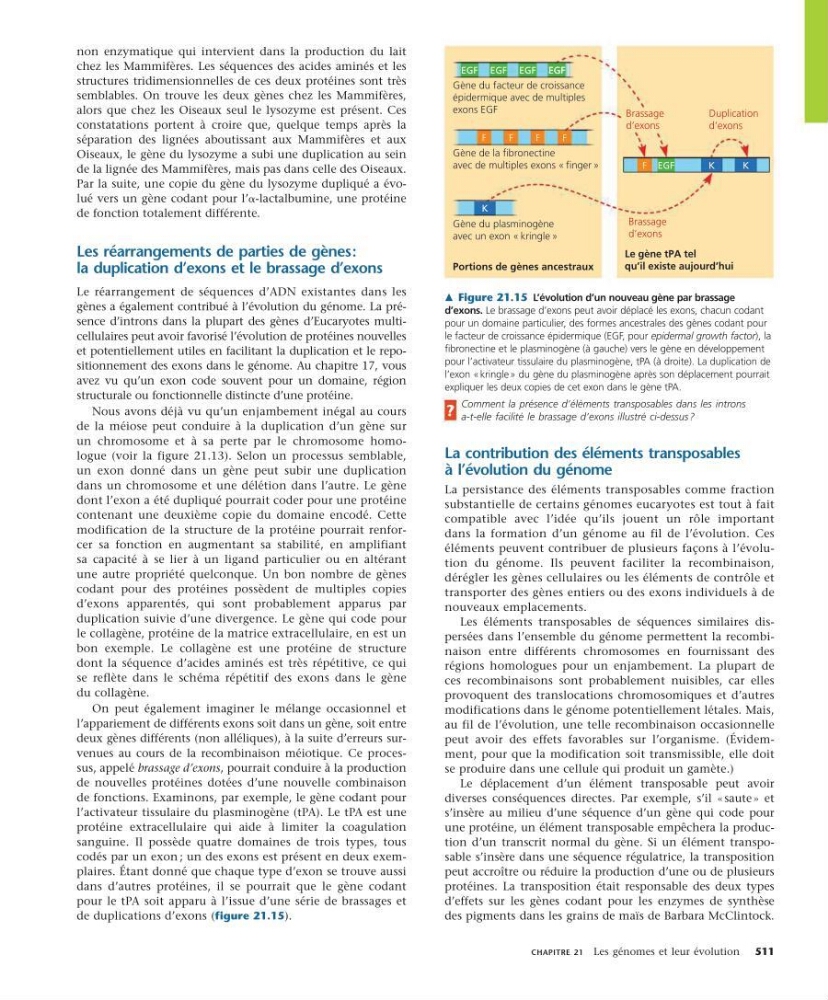
deux gènes différents (non alléliques), à la suite d’erreurs survenues au cours de la recombinaison méiotique. Ce processus, appelé brassage d’exons, pourrait conduire à la production
de nouvelles protéines dotées d’une nouvelle combinaison
de fonctions. Examinons, par exemple, le gène codant pour
l’activateur tissulaire du plasminogène (tPA). Le tPA est une
protéine extracellulaire qui aide à limiter la coagulation
sanguine. Il possède quatre domaines de trois types, tous
codés par un exon ; un des exons est présent en deux exemplaires. Étant donné que chaque type d’exon se trouve aussi
dans d’autres protéines, il se pourrait que le gène codant
pour le tPA soit apparu à l’issue d’une série de brassages et
de duplications d’exons (figure 21.15).
La contribution des éléments transposables
à l’évolution du génome
La persistance des éléments transposables comme fraction
substantielle de certains génomes eucaryotes est tout à fait
compatible avec l’idée qu’ils jouent un rôle important
dans la formation d’un génome au fil de l’évolution. Ces
éléments peuvent contribuer de plusieurs façons à l’évolution du génome. Ils peuvent faciliter la recombinaison,
dérégler les gènes cellulaires ou les éléments de contrôle et
transporter des gènes entiers ou des exons individuels à de
nouveaux emplacements.
Les éléments transposables de séquences similaires dispersées dans l’ensemble du génome permettent la recombinaison entre différents chromosomes en fournissant des
régions homologues pour un enjambement. La plupart de
ces recombinaisons sont probablement nuisibles, car elles
provoquent des translocations chromosomiques et d’autres
modifications dans le génome potentiellement létales. Mais,
au fil de l’évolution, une telle recombinaison occasionnelle
peut avoir des effets favorables sur l’organisme. (Évidemment, pour que la modification soit transmissible, elle doit
se produire dans une cellule qui produit un gamète.)
Le déplacement d’un élément transposable peut avoir
diverses conséquences directes. Par exemple, s’il « saute » et
s’insère au milieu d’une séquence d’un gène qui code pour
une protéine, un élément transposable empêchera la production d’un transcrit normal du gène. Si un élément transposable s’insère dans une séquence régulatrice, la transposition
peut accroître ou réduire la production d’une ou de plusieurs
protéines. La transposition était responsable des deux types
d’effets sur les gènes codant pour les enzymes de synthèse
des pigments dans les grains de maïs de Barbara McClintock.
m Figure 21.15 L’évolution d’un nouveau gène par brassage
d’exons. Le brassage d’exons peut avoir déplacé les exons, chacun codant
pour un domaine particulier, des formes ancestrales des gènes codant pour
le facteur de croissance épidermique (EGF, pour epidermal growth factor), la
fibronectine et le plasminogène (à gauche) vers le gène en développement
pour l’activateur tissulaire du plasminogène, tPA (à droite). La duplication de
l’exon « kringle » du gène du plasminogène après son déplacement pourrait
expliquer les deux copies de cet exon dans le gène tPA.
Comment la présence d’éléments transposables dans les introns
a-t-elle facilité le brassage d’exons illustré ci-dessus ?
?
EGF EGF EGF EGF
EGF
F
Gène du facteur de croissance
épidermique avec de multiples
exons EGF
Duplication
d’exons
Brassage
d’exons
Brassage
d’exons
Gène de la fibronectine
avec de multiples exons « finger »
Gène du plasminogène
avec un exon « kringle »
Portions de gènes ancestraux
Le gène tPA tel
qu’il existe aujourd’hui
K
F
F
F
F EGF
K
K