

chapitre 18 La régulation de l’expression génique 439
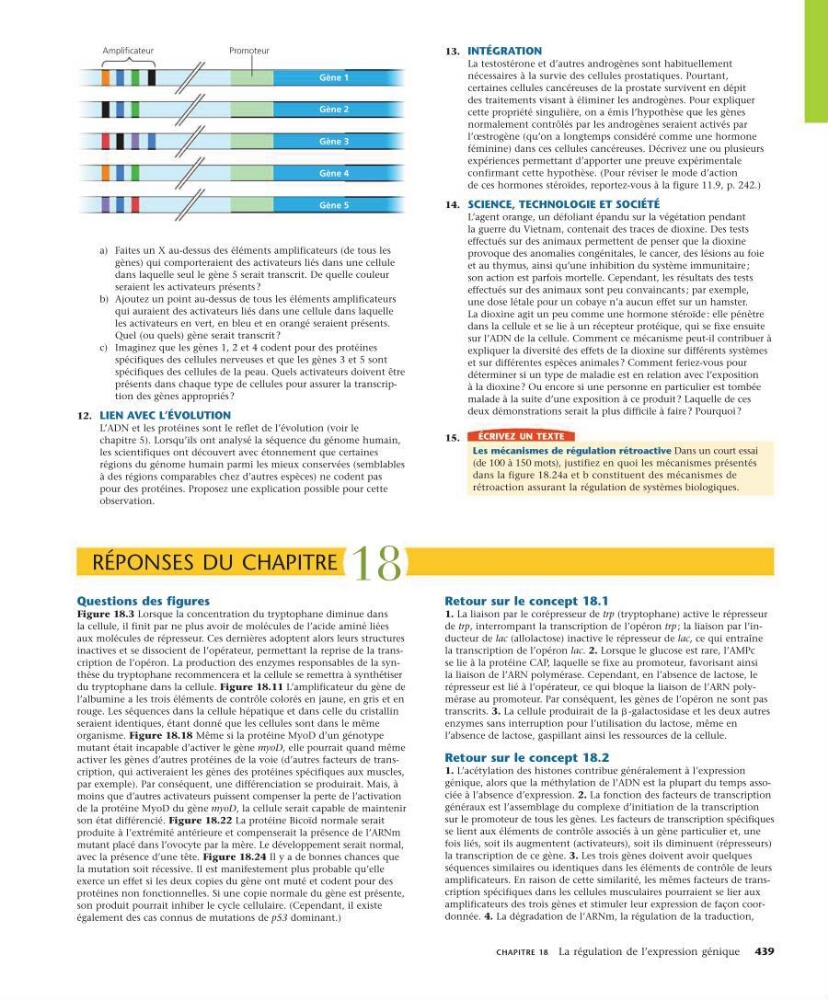
Amplificateur
Promoteur
Gène 1
Gène 2
Gène 3
Gène 4
Gène 5
a) Faites un X au-dessus des éléments amplificateurs (de tous les
gènes) qui comporteraient des activateurs liés dans une cellule
dans laquelle seul le gène 5 serait transcrit. De quelle couleur
seraient les activateurs présents ?
b) Ajoutez un point au-dessus de tous les éléments amplificateurs
qui auraient des activateurs liés dans une cellule dans laquelle
les activateurs en vert, en bleu et en orangé seraient présents.
Quel (ou quels) gène serait transcrit ?
c) Imaginez que les gènes 1, 2 et 4 codent pour des protéines
spé cifiques des cellules nerveuses et que les gènes 3 et 5 sont
spécifiques des cellules de la peau. Quels activateurs doivent être
présents dans chaque type de cellules pour assurer la transcription des gènes appropriés ?
12. lIen aveC l’évolutIon
L’ADN et les protéines sont le reflet de l’évolution (voir le
chapitre 5). Lorsqu’ils ont analysé la séquence du génome humain,
les scienti fiques ont découvert avec étonnement que certaines
régions du génome humain parmi les mieux conservées (semblables
à des régions comparables chez d’autres espèces) ne codent pas
pour des protéines. Proposez une explication possible pour cette
observation.
13. IntéGratIon
La testostérone et d’autres androgènes sont habituellement
nécessaires à la survie des cellules prostatiques. Pourtant,
certaines cellules cancéreuses de la prostate survivent en dépit
des traitements visant à éliminer les androgènes. Pour expliquer
cette propriété singulière, on a émis l’hypothèse que les gènes
normalement contrôlés par les androgènes seraient activés par
l’œstrogène (qu’on a longtemps considéré comme une hormone
féminine) dans ces cellules cancéreuses. Décrivez une ou plusieurs
expériences permettant d’apporter une preuve expérimentale
confirmant cette hypothèse. (Pour réviser le mode d’action
de ces hormones stéroïdes, reportez-vous à la figure 11.9, p. 242.)
14. sCIenCe, teCHnoloGIe et soCIété
L’agent orange, un défoliant épandu sur la végétation pendant
la guerre du Vietnam, contenait des traces de dioxine. Des tests
effectués sur des animaux permettent de penser que la dioxine
provoque des anomalies congénitales, le cancer, des lésions au foie
et au thymus, ainsi qu’une inhibition du système immunitaire ;
son action est parfois mortelle. Cependant, les résultats des tests
effectués sur des animaux sont peu convaincants ; par exemple,
une dose létale pour un cobaye n’a aucun effet sur un hamster.
La dioxine agit un peu comme une hormone stéroïde : elle pénètre
dans la cellule et se lie à un récepteur protéique, qui se fixe ensuite
sur l’ADN de la cellule. Comment ce mécanisme peut-il contribuer à
expliquer la diversité des effets de la dioxine sur différents systèmes
et sur différentes espèces animales ? Comment feriez-vous pour
déterminer si un type de maladie est en relation avec l’exposition
à la dioxine ? Ou encore si une personne en particulier est tombée
malade à la suite d’une exposition à ce produit ? Laquelle de ces
deux démonstrations serait la plus difficile à faire ? Pourquoi ?
15.
éCrIvez un teXte
les mécanismes de régulation rétroactive Dans un court essai
(de 100 à 150 mots), justifiez en quoi les mécanismes présentés
dans la figure 18.24a et b constituent des mécanismes de
rétroaction assurant la régulation de systèmes biologiques.
Réponses du chapitRe 18
Questions des figures
Figure 18.3 Lorsque la concentration du tryptophane diminue dans
la cellule, il finit par ne plus avoir de molécules de l’acide aminé liées
aux molécules de répresseur. Ces dernières adoptent alors leurs structures
inactives et se dissocient de l’opérateur, permettant la reprise de la transcription de l’opéron. La production des enzymes responsables de la synthèse du tryptophane recommencera et la cellule se remettra à synthétiser
du tryptophane dans la cellule. Figure 18.11 L’amplificateur du gène de
l’albumine a les trois éléments de contrôle colorés en jaune, en gris et en
rouge. Les séquences dans la cellule hépatique et dans celle du cristallin
seraient identiques, étant donné que les cellules sont dans le même
organisme. Figure 18.18 Même si la protéine MyoD d’un génotype
mutant était incapable d’activer le gène myoD, elle pourrait quand même
activer les gènes d’autres protéines de la voie (d’autres facteurs de transcription, qui activeraient les gènes des protéines spécifiques aux muscles,
par exemple). Par conséquent, une différenciation se produirait. Mais, à
moins que d’autres activateurs puissent compenser la perte de l’activation
de la protéine MyoD du gène myoD, la cellule serait capable de maintenir
son état différencié. Figure 18.22 La protéine Bicoïd normale serait
produite à l’extrémité antérieure et compenserait la présence de l’ARNm
mutant placé dans l’ovocyte par la mère. Le développement serait normal,
avec la présence d’une tête. Figure 18.24 Il y a de bonnes chances que
la mutation soit récessive. Il est manifestement plus probable qu’elle
exerce un effet si les deux copies du gène ont muté et codent pour des
protéines non fonctionnelles. Si une copie normale du gène est présente,
son produit pourrait inhiber le cycle cellulaire. (Cependant, il existe
également des cas connus de mutations de p53 dominant.)
retour sur le concept 18.1
1. La liaison par le corépresseur de trp (tryptophane) active le répresseur
de trp, interrompant la transcription de l’opéron trp ; la liaison par l’inducteur de lac (allolactose) inactive le répresseur de lac, ce qui entraîne
la transcription de l’opéron lac. 2. Lorsque le glucose est rare, l’AMPc
se lie à la protéine CAP, laquelle se fixe au promoteur, favorisant ainsi
la liaison de l’ARN polymérase. Cependant, en l’absence de lactose, le
répresseur est lié à l’opérateur, ce qui bloque la liaison de l’ARN polymérase au promoteur. Par conséquent, les gènes de l’opéron ne sont pas
transcrits. 3. La cellule produirait de la b -galactosidase et les deux autres
enzymes sans interruption pour l’utilisation du lactose, même en
l’absence de lactose, gaspillant ainsi les ressources de la cellule.
retour sur le concept 18.2
1. L’acétylation des histones contribue généralement à l’expression
génique, alors que la méthylation de l’ADN est la plupart du temps associée à l’absence d’expression. 2. La fonction des facteurs de transcription
généraux est l’assemblage du complexe d’initiation de la transcription
sur le promoteur de tous les gènes. Les facteurs de transcription spécifiques
se lient aux éléments de contrôle associés à un gène particulier et, une
fois liés, soit ils augmentent (activateurs), soit ils diminuent (répresseurs)
la transcription de ce gène. 3. Les trois gènes doivent avoir quelques
séquences similaires ou identiques dans les éléments de contrôle de leurs
amplificateurs. En raison de cette similarité, les mêmes facteurs de transcription spécifiques dans les cellules musculaires pourraient se lier aux
amplificateurs des trois gènes et stimuler leur expression de façon coordonnée. 4. La dégradation de l’ARNm, la régulation de la traduction,