

388 trOiSiÈMe partie La génétique
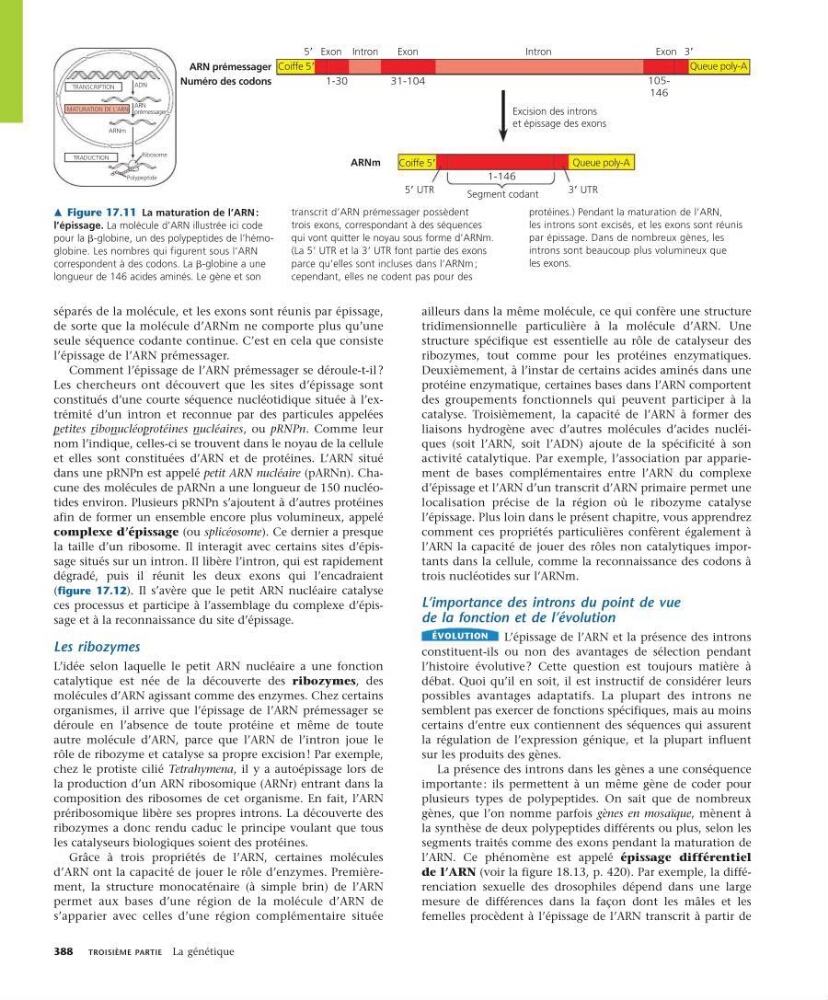
séparés de la molécule, et les exons sont réunis par épissage,
de sorte que la molécule d’ARNm ne comporte plus qu’une
seule séquence codante continue. C’est en cela que consiste
l’épissage de l’ARN prémessager.
Comment l’épissage de l’ARN prémessager se déroule-t-il ?
Les chercheurs ont découvert que les sites d’épissage sont
constitués d’une courte séquence nucléotidique située à l’extrémité d’un intron et reconnue par des particules appelées
petites ribonucléoprotéines nucléaires, ou pRNPn. Comme leur
nom l’indique, celles-ci se trouvent dans le noyau de la cellule
et elles sont constituées d’ARN et de protéines. L’ARN situé
dans une pRNPn est appelé petit ARN nucléaire (pARNn). Chacune des molécules de pARNn a une longueur de 150 nucléotides environ. Plusieurs pRNPn s’ajoutent à d’autres protéines
afin de former un ensemble encore plus volumineux, appelé
complexe d’épissage (ou splicéosome). Ce dernier a presque
la taille d’un ribosome. Il interagit avec certains sites d’épissage situés sur un intron. Il libère l’intron, qui est rapidement
dégradé, puis il réunit les deux exons qui l’encadraient
(figure 17.12). Il s’avère que le petit ARN nucléaire catalyse
ces processus et participe à l’assemblage du complexe d’épissage et à la reconnaissance du site d’épissage.
Les ribozymes
L’idée selon laquelle le petit ARN nucléaire a une fonction
catalytique est née de la découverte des ribozymes, des
molécules d’ARN agissant comme des enzymes. Chez certains
organismes, il arrive que l’épissage de l’ARN prémessager se
déroule en l’absence de toute protéine et même de toute
autre molécule d’ARN, parce que l’ARN de l’intron joue le
rôle de ribozyme et catalyse sa propre excision ! Par exemple,
chez le protiste cilié Tetrahymena, il y a autoépissage lors de
la production d’un ARN ribosomique (ARNr) entrant dans la
composition des ribosomes de cet organisme. En fait, l’ARN
préribosomique libère ses propres introns. La découverte des
ribozymes a donc rendu caduc le principe voulant que tous
les catalyseurs biologiques soient des protéines.
Grâce à trois propriétés de l’ARN, certaines molécules
d’ARN ont la capacité de jouer le rôle d’enzymes. Premièrement, la structure monocaténaire (à simple brin) de l’ARN
permet aux bases d’une région de la molécule d’ARN de
s’apparier avec celles d’une région complémentaire située
ailleurs dans la même molécule, ce qui confère une structure
tridimensionnelle particulière à la molécule d’ARN. Une
structure spécifique est essentielle au rôle de catalyseur des
ribozymes, tout comme pour les protéines enzymatiques.
Deuxièmement, à l’instar de certains acides aminés dans une
protéine enzymatique, certaines bases dans l’ARN comportent
des groupements fonctionnels qui peuvent participer à la
catalyse. Troisièmement, la capacité de l’ARN à former des
liaisons hydrogène avec d’autres molécules d’acides nucléiques (soit l’ARN, soit l’ADN) ajoute de la spécificité à son
activité catalytique. Par exemple, l’association par appariement de bases complémentaires entre l’ARN du complexe
d’épissage et l’ARN d’un transcrit d’ARN primaire permet une
localisation précise de la région où le ribozyme catalyse
l’épissage. Plus loin dans le présent chapitre, vous apprendrez
comment ces propriétés particulières confèrent également à
l’ARN la capacité de jouer des rôles non catalytiques importants dans la cellule, comme la reconnaissance des codons à
trois nucléotides sur l’ARNm.
L’importance des introns du point de vue
de la fonction et de l’évolution
évolutIon
L’épissage de l’ARN et la présence des introns
constituent-ils ou non des avantages de sélection pendant
l’histoire évolutive ? Cette question est toujours matière à
débat. Quoi qu’il en soit, il est instructif de considérer leurs
possibles avantages adaptatifs. La plupart des introns ne
semblent pas exercer de fonctions spécifiques, mais au moins
certains d’entre eux contiennent des séquences qui assurent
la régulation de l’expression génique, et la plupart influent
sur les produits des gènes.
La présence des introns dans les gènes a une conséquence
importante : ils permettent à un même gène de coder pour
plusieurs types de polypeptides. On sait que de nombreux
gènes, que l’on nomme parfois gènes en mosaïque, mènent à
la synthèse de deux polypeptides différents ou plus, selon les
segments traités comme des exons pendant la maturation de
l’ARN. Ce phénomène est appelé épissage différentiel
de l’ARN (voir la figure 18.13, p. 420). Par exemple, la différenciation sexuelle des drosophiles dépend dans une large
mesure de différences dans la façon dont les mâles et les
femelles pro cèdent à l’épissage de l’ARN transcrit à partir de
Exon
1-30
31-104
105146
Intron
Exon
Intron
Exon
5
3
Excision des introns
et épissage des exons
Segment codant
ARN prémessager
Numéro des codons
ARNm
Queue poly-A
Coiffe 5
1-146
Queue poly-A
Coiffe 5
5 UTR
3 UTR
ADN
ARNm
ARN
prémessager
TRANSCRIPTION
MATURATION DE L’ARN
TRADUCTION
Polypeptide
Ribosome
m Figure 17.11 La maturation de l’ARN :
l’épissage. La molécule d’ARN illustrée ici code
pour la b-globine, un des polypeptides de l’hémoglobine. Les nombres qui figurent sous l’ARN
correspondent à des codons. La b-globine a une
longueur de 146 acides aminés. Le gène et son
transcrit d’ARN prémessager possèdent
trois exons, correspondant à des séquences
qui vont quitter le noyau sous forme d’ARNm.
(La 59 UTR et la 39 UTR font partie des exons
parce qu’elles sont incluses dans l’ARNm ;
cependant, elles ne codent pas pour des
protéines.) Pendant la maturation de l’ARN,
les introns sont excisés, et les exons sont réunis
par épissage. Dans de nombreux gènes, les
introns sont beaucoup plus volumineux que
les exons.