

364 trOiSiÈMe partie La génétique
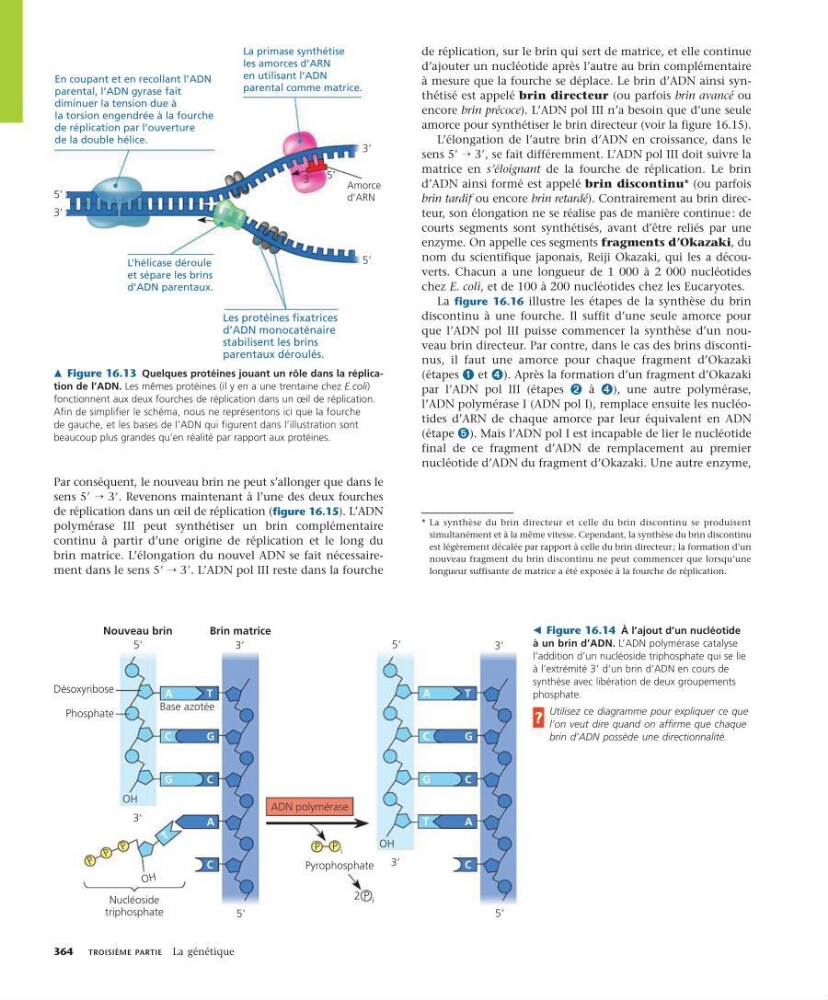
Par conséquent, le nouveau brin ne peut s’allonger que dans le
sens 59 → 39. Revenons maintenant à l’une des deux fourches
de réplication dans un œil de réplication (figure 16.15). L’ADN
polymérase III peut synthétiser un brin complémentaire
continu à partir d’une origine de réplication et le long du
brin matrice. L’élongation du nouvel ADN se fait nécessairement dans le sens 59 → 39. L’ADN pol III reste dans la fourche
de réplication, sur le brin qui sert de matrice, et elle continue
d’ajouter un nucléotide après l’autre au brin complémentaire
à mesure que la fourche se déplace. Le brin d’ADN ainsi synthétisé est appelé brin directeur (ou parfois brin avancé ou
encore brin précoce). L’ADN pol III n’a besoin que d’une seule
amorce pour synthétiser le brin directeur (voir la figure 16.15).
L’élongation de l’autre brin d’ADN en croissance, dans le
sens 59 → 39, se fait différemment. L’ADN pol III doit suivre la
matrice en s’éloignant de la fourche de réplication. Le brin
d’ADN ainsi formé est appelé brin discontinu* (ou parfois
brin tardif ou encore brin retardé). Contrairement au brin directeur, son élongation ne se réalise pas de manière continue : de
courts segments sont synthétisés, avant d’être reliés par une
enzyme. On appelle ces segments fragments d’Okazaki, du
nom du scientifique japonais, Reiji Okazaki, qui les a découverts. Chacun a une longueur de 1 000 à 2 000 nucléotides
chez E. coli, et de 100 à 200 nucléotides chez les Eucaryotes.
La figure 16.16 illustre les étapes de la synthèse du brin
discontinu à une fourche. Il suffit d’une seule amorce pour
que l’ADN pol III puisse commencer la synthèse d’un nouveau brin directeur. Par contre, dans le cas des brins discontinus, il faut une amorce pour chaque fragment d’Okazaki
(étapes ➊ et ➍). Après la for mation d’un fragment d’Okazaki
par l’ADN pol III (étapes ➋ à ➍), une autre polymérase,
l’ADN polymérase I (ADN pol I), remplace ensuite les nucléotides d’ARN de chaque amorce par leur équivalent en ADN
(étape ➎). Mais l’ADN pol I est inca pable de lier le nucléotide
final de ce fragment d’ADN de remplacement au premier
nucléotide d’ADN du fragment d’Okazaki. Une autre enzyme,
* La synthèse du brin directeur et celle du brin discontinu se produisent
simultanément et à la même vitesse. Cependant, la synthèse du brin discontinu
est légèrement décalée par rapport à celle du brin directeur ; la formation d’un
nouveau fragment du brin discontinu ne peut commencer que lorsqu’une
longueur suffisante de matrice a été exposée à la fourche de réplication.
Amorce
d’ARN
En coupant et en recollant l’ADN
parental, l’ADN gyrase fait
diminuer la tension due à
la torsion engendrée à la fourche
de réplication par l’ouverture
de la double hélice.
Les protéines fixatrices
d’ADN monocaténaire
stabilisent les brins
parentaux déroulés.
L’hélicase déroule
et sépare les brins
d’ADN parentaux.
La primase synthétise
les amorces d’ARN
en utilisant l’ADN
parental comme matrice.
5’
3’
5’
5’
3’
3’
m Figure 16.13 Quelques protéines jouant un rôle dans la réplication de l’ADN. Les mêmes protéines (il y en a une trentaine chez E.coli)
fonctionnent aux deux fourches de réplication dans un œil de réplication.
Afin de simplifier le schéma, nous ne représentons ici que la fourche
de gauche, et les bases de l’ADN qui figurent dans l’illustration sont
beaucoup plus grandes qu’en réalité par rapport aux protéines.
A
T
C
G
G
C
T
A
C
O H
OH
Base azotée
Désoxyribose
Phosphate
Nouveau brin
Brin matrice
A
T
C
G
G
C
A
C
OH
Pyrophosphate
ADN polymérase
Nucléoside
triphosphate
P P i
P
2 i
P
P
5‘
3‘
5‘
3‘
3‘
3‘
5‘
5‘
P
T
Figure 16.14 À l’ajout d’un nucléotide
à un brin d’ADN. L’ADN polymérase catalyse
l’addition d’un nucléoside triphosphate qui se lie
à l’extrémité 39 d’un brin d’ADN en cours de
synthèse avec libération de deux groupements
phosphate.
Utilisez ce diagramme pour expliquer ce que
l’on veut dire quand on affirme que chaque
brin d’ADN possède une directionnalité.
?