

chapitre 16 Les bases moléculaires de l’hérédité 363
molécules ressemblent à l’ATP (adénosine triphosphate ; voir
la figure 8.8, p. 167). En fait, l’ATP (qui alimente le métabolisme énergétique) ne diffère du dATP (désoxynucléoside triphosphate qui fournit le nucléotide adénine à l’ADN) que par
son glucide. L’ATP renferme du ribose, alors que l’ADN contient
du désoxyribose. Comme l’ATP, les nucléosides triphosphates
intervenant dans la synthèse de l’ADN sont chimiquement
actifs, en partie parce que leur queue triphosphate contient un
regroupement instable de charges négatives. En se fixant à
l’extré mité du brin d’ADN en cours de synthèse, chaque monomère perd deux groupements phosphate sous la forme d’une
molécule de pyrophosphate ( P — P i ). L’hydrolyse subséquente
du pyrophosphate en deux molécules de phosphate inorganique ( P i ) constitue une réaction exergonique couplée. Celleci
fournit l’énergie nécessaire à la polymérisation des nucléotides
menant à la formation de l’ADN (figure 16.14).
L’élongation antiparallèle
Nous avons déjà signalé que les deux extrémités d’un brin
d’ADN sont différentes, donnant à chaque brin une directionnalité, comme une rue à sens unique (voir la figure 16.5).
De plus, les deux brins dans la double hélice d’ADN sont antiparallèles, ce qui signifie qu’ils ont des directions opposées,
comme une route à chaussées séparées (voir la figure 16.14).
Manifestement, les deux nouveaux brins formés durant
la réplication doivent aussi être antiparallèles à leur brin
complémentaire.
De quelle façon l’arrangement antiparallèle de la double
hélice influetil sur la réplication ? À cause de leur structure,
les ADN polymérases peuvent ajouter des nucléotides seulement à l’extrémité libre 39 d’une amorce ou d’un brin d’ADN
en croissance, jamais à l’extrémité 59 (voir la figure 16.14).
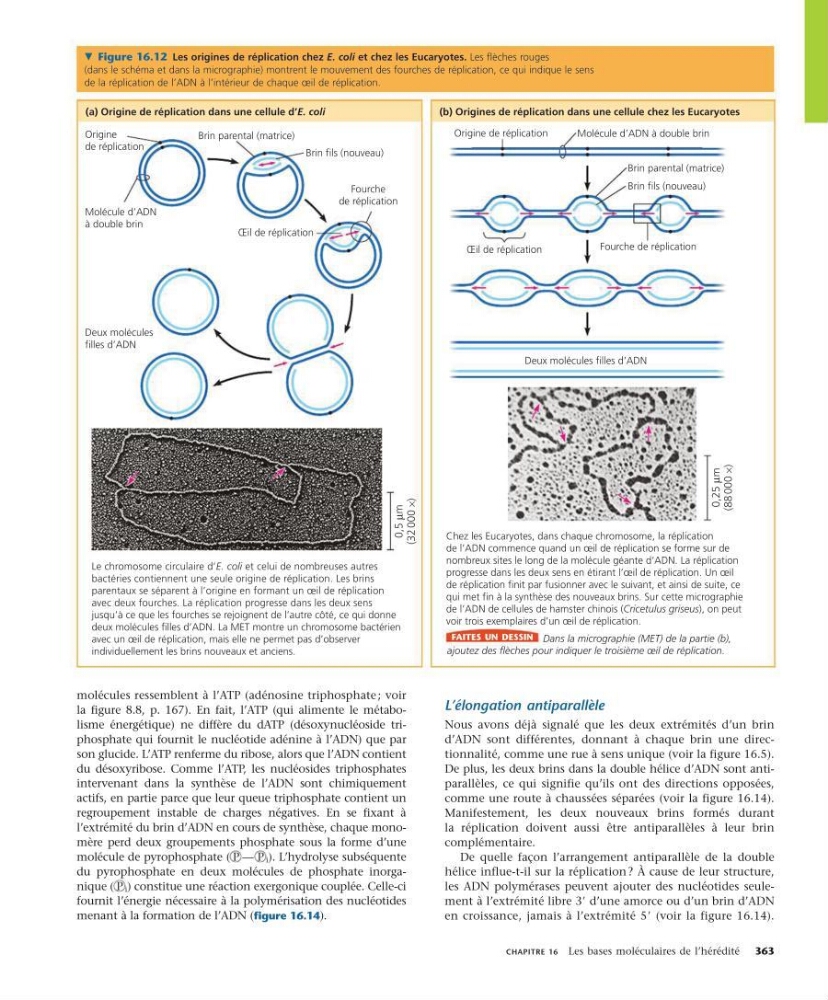
. Figure 16.12 Les origines de réplication chez E. coli et chez les Eucaryotes. Les flèches rouges
(dans le schéma et dans la micrographie) montrent le mouvement des fourches de réplication, ce qui indique le sens
de la réplication de l’ADN à l’intérieur de chaque œil de réplication.
(a) Origine de réplication dans une cellule d’E. coli
(b) Origines de réplication dans une cellule chez les Eucaryotes
Origine de réplication
Origine
de réplication
Molécule d’ADN
à double brin
Molécule d’ADN à double brin
Deux molécules
filles d’ADN
Brin parental (matrice)
Œil de réplication
Brin parental (matrice)
Fourche de réplication
Fourche
de réplication
Œil de réplication
Deux molécules filles d’ADN
Brin fils (nouveau)
Brin fils (nouveau)
Chez les Eucaryotes, dans chaque chromosome, la réplication
de l’ADN commence quand un œil de réplication se forme sur de
nombreux sites le long de la molécule géante d’ADN. La réplication
progresse dans les deux sens en étirant l’œil de réplication. Un œil
de réplication finit par fusionner avec le suivant, et ainsi de suite, ce
qui met fin à la synthèse des nouveaux brins. Sur cette micrographie
de l’ADN de cellules de hamster chinois (Cricetulus griseus), on peut
voir trois exemplaires d’un œil de réplication.
Le chromosome circulaire d’E. coli et celui de nombreuses autres
bactéries contiennent une seule origine de réplication. Les brins
parentaux se séparent à l’origine en formant un œil de réplication
avec deux fourches. La réplication progresse dans les deux sens
jusqu’à ce que les fourches se rejoignent de l’autre côté, ce qui donne
deux molécules filles d’ADN. La MET montre un chromosome bactérien
avec un œil de réplication, mais elle ne permet pas d’observer
individuellement les brins nouveaux et anciens.
0,5
Rm
(32 000
w)
0,25
Rm
(88 000
w)
Dans la micrographie (MET) de la partie (b),
ajoutez des flèches pour indiquer le troisième œil de réplication.
FAITES UN DESSIN