

360 trOiSiÈMe partie La génétique
postulés permettent d’entrevoir directement un mécanisme
possible de recopiage du matériel génétique*. »
Dans la section qui suit, nous allons voir le principe général de la réplication de l’ADN, puis nous nous pencherons sur
certains aspects importants de ce processus.
Le principe fondamental : l’appariement
des bases azotées à un brin matrice
Dans un deuxième article, Watson et Crick ont résumé leur
hypothèse concernant la réplication de l’ADN :
Notre modèle de l’acide désoxyribonucléique est un assemblage de deux matrices complémentaires. Selon nous, avant
la réplication, les liaisons hydrogène sont rompues. Les
deux chaînes se déroulent alors et se séparent. Chacune agit
comme une matrice : il se forme le long d’elle une nouvelle
chaîne qui lui est associée, de sorte qu’on se retrouve avec
deux paires de chaînes là où, au départ, il n’y en avait
qu’une. De plus, la séquence des paires de bases est ainsi
reproduite de façon exacte**.
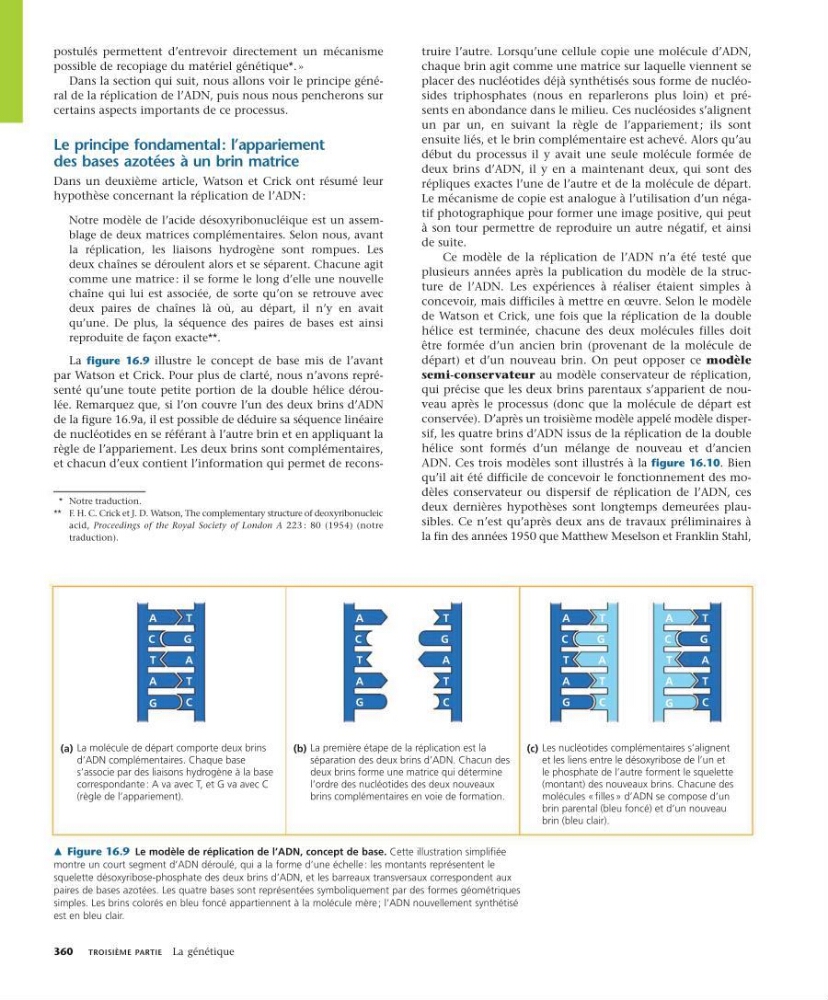
La figure 16.9 illustre le concept de base mis de l’avant
par Watson et Crick. Pour plus de clarté, nous n’avons représenté qu’une toute petite portion de la double hélice déroulée. Remarquez que, si l’on couvre l’un des deux brins d’ADN
de la figure 16.9a, il est possible de déduire sa séquence linéaire
de nucléotides en se référant à l’autre brin et en appliquant la
règle de l’appariement. Les deux brins sont complémentaires,
et chacun d’eux contient l’information qui permet de recons* Notre traduction.
** F. H. C. Crick et J. D. Watson, The complementary structure of deoxyribonucleic
acid, Proceedings of the Royal Society of London A 223 : 80 (1954) (notre
traduction).
truire l’autre. Lorsqu’une cellule copie une molécule d’ADN,
chaque brin agit comme une matrice sur laquelle viennent se
placer des nucléotides déjà synthétisés sous forme de nucléosides triphosphates (nous en reparlerons plus loin) et présents en abondance dans le milieu. Ces nucléo sides s’alignent
un par un, en suivant la règle de l’appa rie ment ; ils sont
ensuite liés, et le brin complémentaire est achevé. Alors qu’au
début du processus il y avait une seule molécule formée de
deux brins d’ADN, il y en a maintenant deux, qui sont des
répliques exactes l’une de l’autre et de la molécule de départ.
Le mécanisme de copie est analogue à l’utilisation d’un négatif photographique pour former une image positive, qui peut
à son tour permettre de reproduire un autre négatif, et ainsi
de suite.
Ce modèle de la réplication de l’ADN n’a été testé que
plusieurs années après la publication du modèle de la structure de l’ADN. Les expériences à réaliser étaient simples à
concevoir, mais difficiles à mettre en œuvre. Selon le modèle
de Watson et Crick, une fois que la réplication de la double
hélice est terminée, chacune des deux molécules filles doit
être formée d’un ancien brin (provenant de la molécule de
départ) et d’un nouveau brin. On peut opposer ce modèle
semi-conservateur au modèle conservateur de réplication,
qui précise que les deux brins parentaux s’apparient de nouveau après le processus (donc que la molécule de départ est
conservée). D’après un troisième modèle appelé modèle dispersif, les quatre brins d’ADN issus de la réplication de la double
hélice sont formés d’un mélange de nouveau et d’ancien
ADN. Ces trois modèles sont illustrés à la figure 16.10. Bien
qu’il ait été difficile de concevoir le fonctionnement des modèles conservateur ou dispersif de réplication de l’ADN, ces
deux dernières hypothèses sont longtemps demeurées plausibles. Ce n’est qu’après deux ans de travaux préliminaires à
la fin des années 1950 que Matthew Meselson et Franklin Stahl,
m Figure 16.9 Le modèle de réplication de l’ADN, concept de base. Cette illustration simplifiée
montre un court segment d’ADN déroulé, qui a la forme d’une échelle : les montants représentent le
squelette désoxyribose-phosphate des deux brins d’ADN, et les barreaux transversaux correspondent aux
paires de bases azotées. Les quatre bases sont représentées symboliquement par des formes géométriques
simples. Les brins colorés en bleu foncé appartiennent à la molécule mère ; l’ADN nouvellement synthétisé
est en bleu clair.
A
C
T
A
G
T
G
A
T
C
A
C
T
A
G
T
G
A
T
C
A
C
T
A
G
T
G
A
T
C
A
C
T
A
G
T
G
A
T
C
(a) La molécule de départ comporte deux brins
d’ADN complémentaires. Chaque base
s’associe par des liaisons hydrogène à la base
correspondante : A va avec T, et G va avec C
(règle de l’appariement).
(b) La première étape de la réplication est la
séparation des deux brins d’ADN. Chacun des
deux brins forme une matrice qui détermine
l’ordre des nucléotides des deux nouveaux
brins complémentaires en voie de formation.
(c) Les nucléotides complémentaires s’alignent
et les liens entre le désoxyribose de l’un et
le phosphate de l’autre forment le squelette
(montant) des nouveaux brins. Chacune des
molécules « filles » d’ADN se compose d’un
brin parental (bleu foncé) et d’un nouveau
brin (bleu clair).