

346 trOiSiÈMe partie La génétique
Chez une espèce donnée, la façon dont les gènes reçoivent
leur empreinte est toujours la même. Par exemple, un gène
qui a reçu une empreinte pour l’expression d’un allèle maternel reçoit toujours une empreinte pour l’expression d’un
allèle maternel, une génération après l’autre.
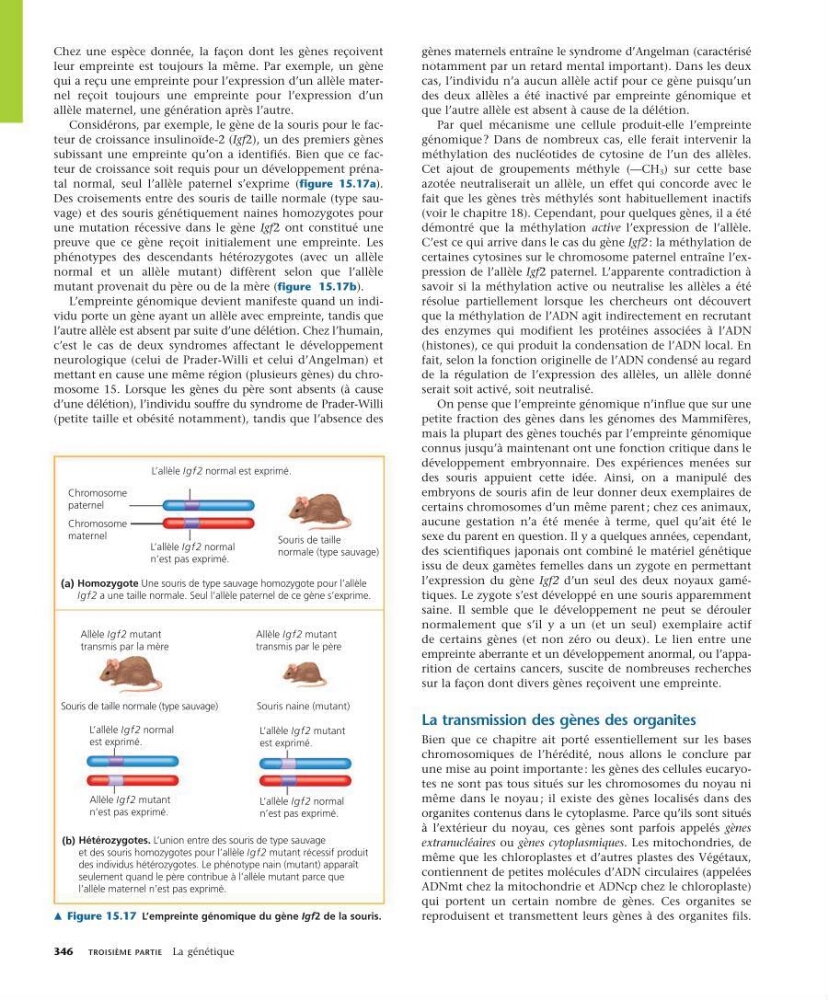
Considérons, par exemple, le gène de la souris pour le facteur de croissance insulinoïde2 (Igf2), un des premiers gènes
subissant une empreinte qu’on a identifiés. Bien que ce facteur de croissance soit requis pour un développement prénatal normal, seul l’allèle paternel s’exprime (figure 15.17a).
Des croisements entre des souris de taille normale (type sauvage) et des souris génétiquement naines homozygotes pour
une mutation récessive dans le gène Igf2 ont constitué une
preuve que ce gène reçoit initialement une empreinte. Les
phénotypes des descendants hétérozygotes (avec un allèle
normal et un allèle mutant) diffèrent selon que l’allèle
mutant provenait du père ou de la mère (figure 15.17b).
L’empreinte génomique devient manifeste quand un individu porte un gène ayant un allèle avec empreinte, tandis que
l’autre allèle est absent par suite d’une délétion. Chez l’humain,
c’est le cas de deux syndromes affectant le développement
neurologique (celui de PraderWilli et celui d’Angelman) et
mettant en cause une même région (plusieurs gènes) du chromosome 15. Lorsque les gènes du père sont absents (à cause
d’une délétion), l’individu souffre du syndrome de PraderWilli
(petite taille et obésité notamment), tandis que l’absence des
gènes maternels entraîne le syndrome d’Angelman (caractérisé
notamment par un retard mental important). Dans les deux
cas, l’individu n’a aucun allèle actif pour ce gène puisqu’un
des deux allèles a été inactivé par empreinte génomique et
que l’autre allèle est absent à cause de la délétion.
Par quel mécanisme une cellule produitelle l’empreinte
génomique ? Dans de nombreux cas, elle ferait intervenir la
méthylation des nucléotides de cytosine de l’un des allèles.
Cet ajout de groupements méthyle (—CH 3 ) sur cette base
azotée neutraliserait un allèle, un effet qui concorde avec le
fait que les gènes très méthylés sont habituellement inactifs
(voir le chapitre 18). Cependant, pour quelques gènes, il a été
démontré que la méthylation active l’expression de l’allèle.
C’est ce qui arrive dans le cas du gène Igf2 : la méthylation de
certaines cytosines sur le chromosome paternel entraîne l’expression de l’allèle Igf2 paternel. L’apparente contradiction à
savoir si la méthylation active ou neutralise les allèles a été
résolue partiellement lorsque les chercheurs ont découvert
que la méthylation de l’ADN agit indirectement en recrutant
des enzymes qui modifient les protéines associées à l’ADN
(histones), ce qui produit la condensation de l’ADN local. En
fait, selon la fonction originelle de l’ADN condensé au regard
de la régulation de l’expression des allèles, un allèle donné
serait soit activé, soit neutralisé.
On pense que l’empreinte génomique n’influe que sur une
petite fraction des gènes dans les génomes des Mammifères,
mais la plupart des gènes touchés par l’empreinte génomique
connus jusqu’à maintenant ont une fonction critique dans le
développement embryonnaire. Des expériences menées sur
des souris appuient cette idée. Ainsi, on a manipulé des
embryons de souris afin de leur donner deux exemplaires de
certains chromosomes d’un même parent ; chez ces animaux,
aucune gestation n’a été menée à terme, quel qu’ait été le
sexe du parent en question. Il y a quelques années, cependant,
des scientifiques japonais ont combiné le matériel géné tique
issu de deux gamètes femelles dans un zygote en permettant
l’expression du gène Igf2 d’un seul des deux noyaux gamétiques. Le zygote s’est développé en une souris apparemment
saine. Il semble que le développement ne peut se dérouler
normalement que s’il y a un (et un seul) exemplaire actif
de certains gènes (et non zéro ou deux). Le lien entre une
empreinte aberrante et un développement anormal, ou l’apparition de certains cancers, suscite de nombreuses recherches
sur la façon dont divers gènes reçoivent une empreinte.
La transmission des gènes des organites
Bien que ce chapitre ait porté essentiellement sur les bases
chromosomiques de l’hérédité, nous allons le conclure par
une mise au point importante : les gènes des cellules eucaryotes ne sont pas tous situés sur les chromosomes du noyau ni
même dans le noyau ; il existe des gènes localisés dans des
organites contenus dans le cytoplasme. Parce qu’ils sont situés
à l’extérieur du noyau, ces gènes sont parfois appelés gènes
extranucléaires ou gènes cytoplasmiques. Les mitochondries, de
même que les chloroplastes et d’autres plastes des Végétaux,
contiennent de petites molécules d’ADN circu laires (appelées
ADNmt chez la mitochondrie et ADNcp chez le chloroplaste)
qui portent un certain nombre de gènes. Ces organites se
reproduisent et transmettent leurs gènes à des organites fils.
Chromosome
paternel
L’allèle Igf2 normal est exprimé.
L’allèle Igf2 normal
n’est pas exprimé.
Souris de taille
normale (type sauvage)
Chromosome
maternel
L’allèle Igf2 normal
est exprimé.
L’allèle Igf2 mutant
est exprimé.
Allèle Igf2 mutant
n’est pas exprimé.
Souris de taille normale (type sauvage)
Souris naine (mutant)
Allèle Igf2 mutant
transmis par la mère
Allèle Igf2 mutant
transmis par le père
L’allèle Igf2 normal
n’est pas exprimé.
(a) Homozygote Une souris de type sauvage homozygote pour l’allèle
Igf2 a une taille normale. Seul l’allèle paternel de ce gène s’exprime.
(b) Hétérozygotes. L’union entre des souris de type sauvage
et des souris homozygotes pour l’allèle Igf2 mutant récessif produit
des individus hétérozygotes. Le phénotype nain (mutant) apparaît
seulement quand le père contribue à l’allèle mutant parce que
l’allèle maternel n’est pas exprimé.
m Figure 15.17 L’empreinte génomique du gène Igf2 de la souris.