

338 trOiSiÈMe partie La génétique
des ailes ne sont pas toujours liés génétiquement. Pour mieux
comprendre cette conclusion, nous devons étudier plus à
fond la recombinaison génétique, c’estàdire l’apparition,
dans la descendance, de combinaisons de caractères qui
n’existaient chez aucun des parents.
La recombinaison et la liaison génétiques
Vous avez vu au chapitre 13 que, chez les organismes sexués,
la méiose et la fécondation aléatoire créent une variation génétique à chaque génération. Nous allons étudier ici les fondements chromosomiques de la recombinaison en relation avec
les résultats de Mendel et de Morgan.
La recombinaison de gènes non liés :
l’assortiment indépendant des chromosomes
À partir de ses croisements, au cours desquels il étudiait
deux caractères, Mendel a constaté que les caractères de certains
descendants formaient des combinaisons diffé rentes de celles
des parents. Par exemple, on peut représenter le croisement
entre un pois hétérozygote à graines jaunes rondes (un dihybride, JjRr) et une plante à graines vertesridées (homozygote pour les deux allèles récessifs, jjrr) par la grille de
Punnett suivante :
JR
Jr
JjRr
jr
jr
jjrr
Jjrr
jR
jjRr
Gamètes du parent
dihybride jaune-rond (JjRr)
Individus
de type
parental
Individus
recombinés
Gamètes du parent
homozygote récessif
vert-ridé (jjrr)
Remarquez que cette grille de Punnett permet de prévoir
que la moitié des individus aura l’un des deux phénotypes
parentaux (génération P). On parle alors de types parentaux.
Mais deux autres phénotypes non parentaux seront également présents. Comme ces individus présenteront de nouvelles combinaisons d’allèles (relatives à la forme et à la couleur
des graines), on dit qu’ils sont de types recombinants ou
recombinés. Lorsque la moitié des descendants (appartenant
à la même génération) est constituée d’individus recombinés,
comme dans cet exemple, les généticiens disent que la fréquence de recombinaison est de 50 %. Les proportions phénotypiques prévues parmi les descendants sont semblables à
celles que Mendel avait observées dans des croisements
JjRr 3 jjrr (un type de croisement de contrôle parce qu’il
révèle le génotype des gamètes produits par la plante dihybride JjRr).
Dans ces croisements de contrôle, on observe une fréquence de recombinaison de 50 % dans le cas de deux gènes
situés sur des chromosomes différents et qui, par conséquent,
ne peuvent pas être liés. Du point de vue physique, la recombinaison de gènes non liés s’explique par l’agencement aléatoire des chromosomes homologues à la métaphase I de la
méiose, qui mène à un assortiment indépendant de deux gènes
non liés (voir figure 13.10, p. 292, et la question dans la légende
de la figure 15.2).
La recombinaison de gènes liés : l’enjambement
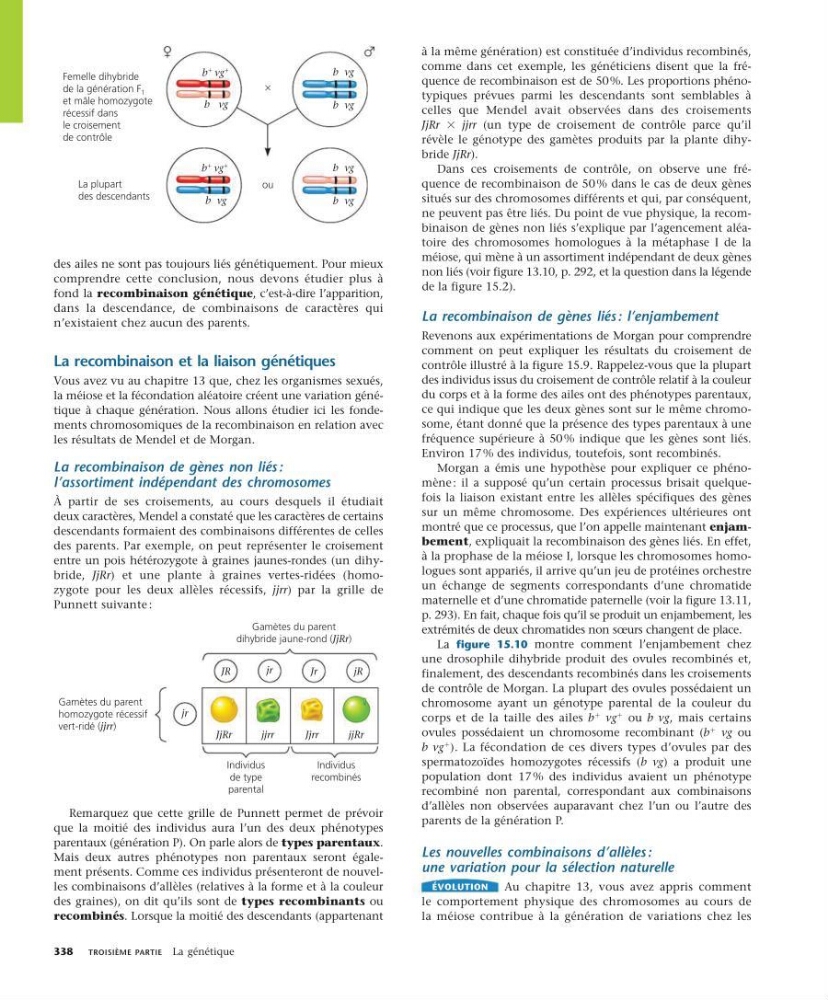
Revenons aux expérimentations de Morgan pour comprendre
comment on peut expliquer les résultats du croisement de
contrôle illustré à la figure 15.9. Rappelezvous que la plupart
des individus issus du croisement de contrôle relatif à la couleur
du corps et à la forme des ailes ont des phénotypes parentaux,
ce qui indique que les deux gènes sont sur le même chromosome, étant donné que la présence des types parentaux à une
fréquence supérieure à 50 % indique que les gènes sont liés.
Environ 17 % des individus, toutefois, sont recombinés.
Morgan a émis une hypothèse pour expliquer ce phénomène : il a supposé qu’un certain processus brisait quelquefois la liaison existant entre les allèles spécifiques des gènes
sur un même chromosome. Des expériences ultérieures ont
montré que ce processus, que l’on appelle maintenant enjambement, expliquait la recombinaison des gènes liés. En effet,
à la prophase de la méiose I, lorsque les chromosomes homologues sont appariés, il arrive qu’un jeu de protéines orchestre
un échange de segments correspondants d’une chromatide
maternelle et d’une chromatide paternelle (voir la figure 13.11,
p. 293). En fait, chaque fois qu’il se produit un enjambement, les
extrémités de deux chromatides non sœurs changent de place.
La figure 15.10 montre comment l’enjambement chez
une drosophile dihybride produit des ovules recombinés et,
finalement, des descendants recombinés dans les croisements
de contrôle de Morgan. La plupart des ovules possédaient un
chromosome ayant un génotype parental de la couleur du
corps et de la taille des ailes b
1
vg
1
ou b vg, mais certains
ovules possédaient un chromosome recombinant (b
1
vg ou
b vg
1
). La fécondation de ces divers types d’ovules par des
spermatozoïdes homozygotes récessifs (b vg) a produit une
population dont 17 % des individus avaient un phénotype
recombiné non parental, correspondant aux combinaisons
d’allèles non observées auparavant chez l’un ou l’autre des
parents de la génération P.
Les nouvelles combinaisons d’allèles :
une variation pour la sélection naturelle
évolutIon
Au chapitre 13, vous avez appris comment
le comportement physique des chromosomes au cours de
la méiose contribue à la génération de variations chez les
b
vg
b vg
w
La plupart
des descendants
vg
b
vg
b
vg
b
b
vg
ou
vg
b
vg
b
Femelle dihybride
de la génération F 1
et mâle homozygote
récessif dans
le croisement
de contrôle