

312 trOiSiÈMe partie La génétique
La généralisation des lois
de la génétique mendélienne
appliquées à deux ou à plusieurs gènes
La dominance, les allèles multiples et la pléiotropie concernent
les effets des allèles d’un seul gène. Nous allons étudier maintenant deux cas où deux ou plusieurs gènes inter viennent
dans la détermination d’un phénotype particulier.
L’épistasie
Dans l’épistasie (du grec epi, « au-dessus de », et stasis, « action
de se tenir »), l’expression phénotypique d’un gène occupant
un locus donné peut agir sur celle d’un autre gène situé sur
un autre locus. Prenons un exemple. Chez les retrievers du
Labrador (appelés couramment « labradors »), le pelage noir est
dominant par rapport au pelage brun. (Nous appellerons N et
n les deux allèles de ce caractère.) Pour qu’un labrador ait un
pelage brun, il faut que son génotype soit homozygote récessif,
nn ; on appelle ces chiens des labradors chocolat. Cependant,
c’est un second gène situé sur un autre locus qui détermine si
le pigment se déposera dans le poil ou non. Son allèle dominant, E, permet au pigment noir ou au pigment brun de se
déposer, selon le génotype du premier locus. Donc, si le labrador est homozygote récessif pour le second locus (ee), son
pelage sera jaune, quel que soit le génotype du premier locus
(brun ou noir). Dans ce cas, le gène pour le dépôt du pigment
(E/e) est épistatique par rapport au gène qui code pour le
pigment noir ou le pigment brun (N/n).
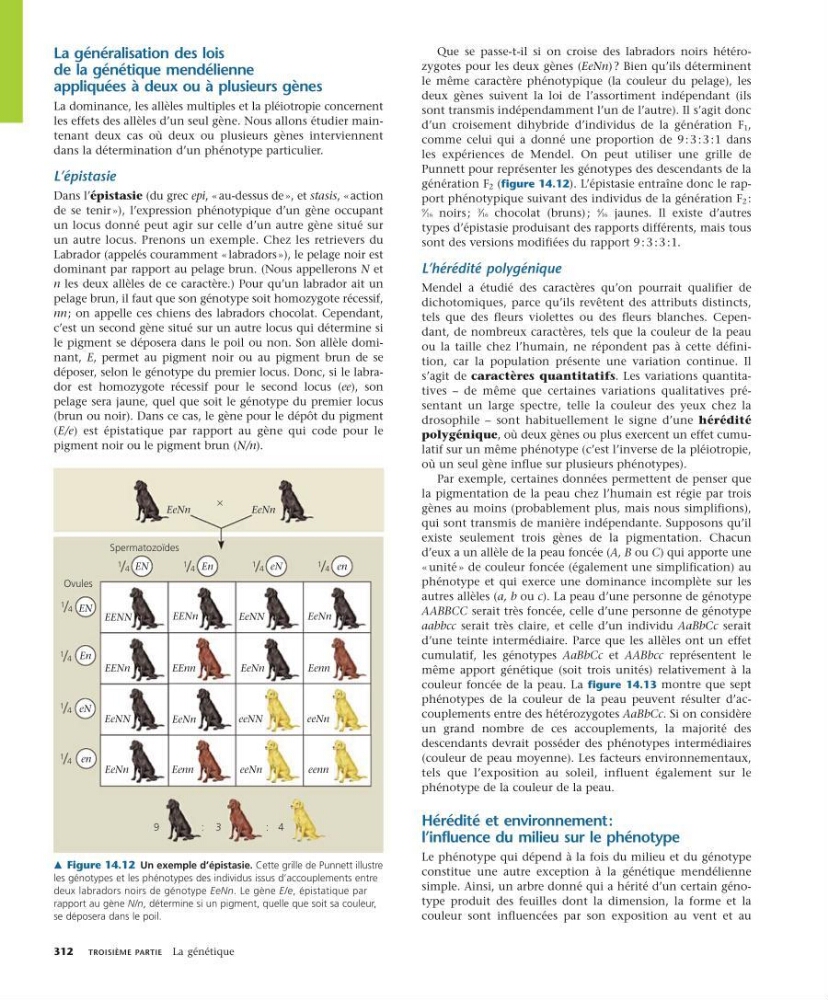
Que se passe-t-il si on croise des labradors noirs hétérozygotes pour les deux gènes (EeNn) ? Bien qu’ils déterminent
le même caractère phénotypique (la couleur du pelage), les
deux gènes suivent la loi de l’assortiment indépendant (ils
sont transmis indépendamment l’un de l’autre). Il s’agit donc
d’un croisement dihybride d’individus de la génération F 1 ,
comme celui qui a donné une proportion de 9 : 3 : 3 : 1 dans
les expériences de Mendel. On peut utiliser une grille de
Punnett pour représenter les génotypes des descendants de la
génération F 2 (figure 14.12). L’épistasie entraîne donc le rapport phénotypique suivant des individus de la génération F 2 :
9
⁄16 noirs ;
3
⁄16 chocolat (bruns) ;
4
⁄16 jaunes. Il existe d’autres
types d’épistasie produisant des rapports différents, mais tous
sont des versions modifiées du rapport 9 : 3 : 3 : 1.
L’hérédité polygénique
Mendel a étudié des caractères qu’on pourrait qualifier de
dichotomiques, parce qu’ils revêtent des attributs distincts,
tels que des fleurs violettes ou des fleurs blanches. Cependant, de nombreux caractères, tels que la couleur de la peau
ou la taille chez l’humain, ne répondent pas à cette définition, car la population présente une variation continue. Il
s’agit de caractères quantitatifs. Les variations quantitatives – de même que certaines variations qualitatives présentant un large spectre, telle la couleur des yeux chez la
drosophile – sont habituellement le signe d’une hérédité
polygénique, où deux gènes ou plus exercent un effet cumulatif sur un même phénotype (c’est l’inverse de la pléiotropie,
où un seul gène influe sur plusieurs phénotypes).
Par exemple, certaines données permettent de penser que
la pigmentation de la peau chez l’humain est régie par trois
gènes au moins (probablement plus, mais nous simplifions),
qui sont transmis de manière indépendante. Supposons qu’il
existe seulement trois gènes de la pigmentation. Chacun
d’eux a un allèle de la peau foncée (A, B ou C) qui apporte une
« unité » de couleur foncée (également une simplification) au
phénotype et qui exerce une dominance incomplète sur les
autres allèles (a, b ou c). La peau d’une personne de génotype
AABBCC serait très foncée, celle d’une personne de génotype
aabbcc serait très claire, et celle d’un individu AaBbCc serait
d’une teinte intermédiaire. Parce que les allèles ont un effet
cumulatif, les génotypes AaBbCc et AABbcc représentent le
même apport génétique (soit trois unités) relativement à la
couleur foncée de la peau. La figure 14.13 montre que sept
phénotypes de la couleur de la peau peuvent résulter d’accouplements entre des hétérozygotes AaBbCc. Si on considère
un grand nombre de ces accouplements, la majorité des
descendants devrait posséder des phénotypes intermédiaires
(couleur de peau moyenne). Les facteurs environnementaux,
tels que l’exposition au soleil, influent également sur le
phénotype de la couleur de la peau.
hérédité et environnement :
l’influence du milieu sur le phénotype
Le phénotype qui dépend à la fois du milieu et du génotype
constitue une autre exception à la génétique mendélienne
simple. Ainsi, un arbre donné qui a hérité d’un certain génotype produit des feuilles dont la dimension, la forme et la
couleur sont influencées par son exposition au vent et au
m Figure 14.12 Un exemple d’épistasie. Cette grille de Punnett illustre
les génotypes et les phénotypes des individus issus d’accouplements entre
deux labradors noirs de génotype EeNn. Le gène E/e, épistatique par
rapport au gène N/n, détermine si un pigment, quelle que soit sa couleur,
se déposera dans le poil.
EN
EN
En
eN
en
Spermatozoïdes
9
3
:
4
:
Ovules
w
eenn
eeNn
eeNN
EeNn
EeNn
EeNn
EeNN
EENN
EeNN
EENn
EENn
EEnn
Eenn
EeNn
EeNn
1 4
1 4
En
1 4
eN
1 4
en
1 4
1 4
1 4
1 4
eeNn
Eenn
EeNn