

chapitre 14 Mendel et le concept de gène 309
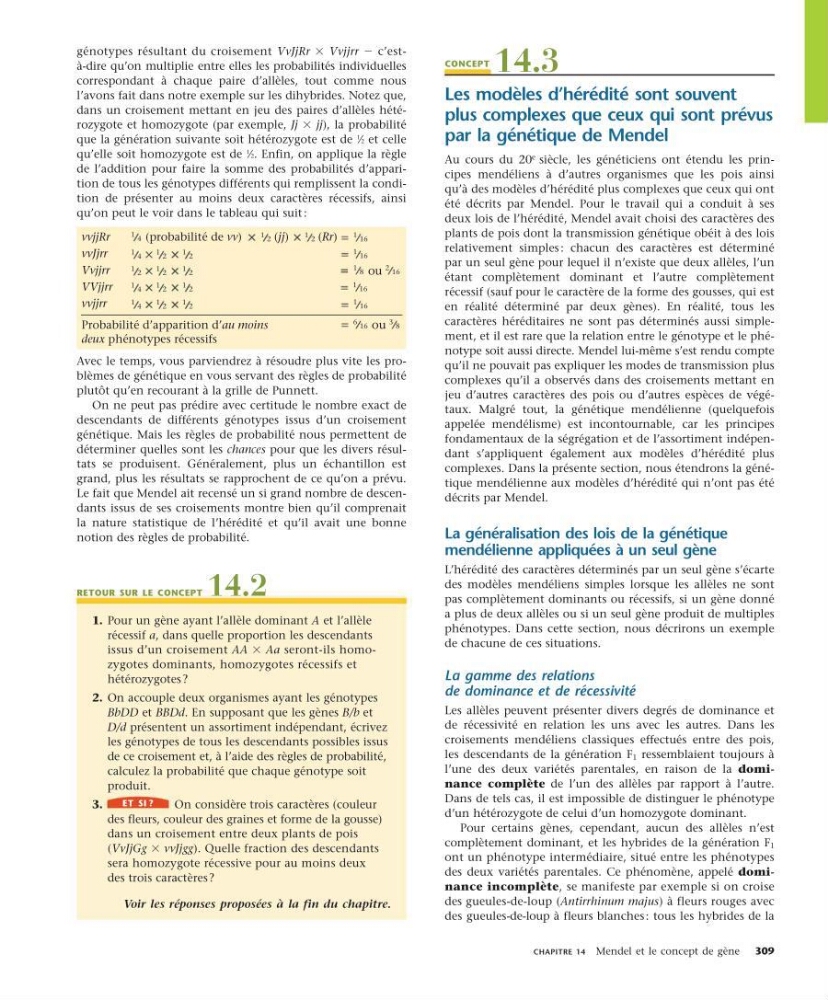
génotypes résultant du croisement VvJjRr 3 Vvjjrr 2 c’està-dire qu’on multiplie entre elles les probabilités indivi duelles
correspondant à chaque paire d’allèles, tout comme nous
l’avons fait dans notre exemple sur les dihybrides. Notez que,
dans un croisement mettant en jeu des paires d’allèles hétérozygote et homozygote (par exemple, Jj 3 jj), la probabilité
que la génération suivante soit hétérozygote est de
1
⁄2 et celle
qu’elle soit homozygote est de
1
⁄ 2. Enfin, on applique la règle
de l’addition pour faire la somme des probabilités d’apparition de tous les génotypes différents qui remplissent la condition de présenter au moins deux caractères récessifs, ainsi
qu’on peut le voir dans le tableau qui suit :
vvjjRr
vvJjrr
Vvjjrr
VVjjrr
vvjjrr
Probabilité d’apparition d’au moins
deux phénotypes récessifs
ou
(probabilité de vv)
(jj)
(Rr)
1 4
1 4
1 4
1 4
1 2
1 2
1 2
1 2
1 2
1 2
1 2
1 2
1 2
1 2
1 2
1 16
1 16
1 16
1 16
6 16
3 8
ou
1 8
2 16
Avec le temps, vous parviendrez à résoudre plus vite les problèmes de génétique en vous servant des règles de probabilité
plutôt qu’en recourant à la grille de Punnett.
On ne peut pas prédire avec certitude le nombre exact de
descendants de différents génotypes issus d’un croisement
génétique. Mais les règles de probabilité nous permettent de
déterminer quelles sont les chances pour que les divers résultats se produisent. Généralement, plus un échantillon est
grand, plus les résultats se rapprochent de ce qu’on a prévu.
Le fait que Mendel ait recensé un si grand nombre de descendants issus de ses croisements montre bien qu’il comprenait
la nature statistique de l’hérédité et qu’il avait une bonne
notion des règles de probabilité.
retour sur le ConCept 14.2
1. Pour un gène ayant l’allèle dominant A et l’allèle
récessif a, dans quelle proportion les descendants
issus d’un croisement AA 3 Aa seront-ils homozygotes dominants, homozygotes récessifs et
hétérozygotes ?
2. On accouple deux organismes ayant les génotypes
BbDD et BBDd. En supposant que les gènes B/b et
D/d présentent un assortiment indépendant, écrivez
les génotypes de tous les descendants possibles issus
de ce croisement et, à l’aide des règles de probabilité,
calculez la probabilité que chaque génotype soit
produit.
3.
et sI ?
On considère trois caractères (couleur
des fleurs, couleur des graines et forme de la gousse)
dans un croisement entre deux plants de pois
(VvJjGg 3 vvJjgg). Quelle fraction des descendants
sera homozygote récessive pour au moins deux
des trois caractères ?
Voir les réponses proposées à la fin du chapitre.
ConCept
14.3
Les modèles d’hérédité sont souvent
plus complexes que ceux qui sont prévus
par la génétique de Mendel
Au cours du 20
e
siècle, les généticiens ont étendu les principes mendéliens à d’autres organismes que les pois ainsi
qu’à des modèles d’hérédité plus complexes que ceux qui ont
été décrits par Mendel. Pour le travail qui a conduit à ses
deux lois de l’hérédité, Mendel avait choisi des caractères des
plants de pois dont la transmission génétique obéit à des lois
relativement simples : chacun des caractères est déterminé
par un seul gène pour lequel il n’existe que deux allèles, l’un
étant complètement dominant et l’autre complètement
récessif (sauf pour le caractère de la forme des gousses, qui est
en réalité déterminé par deux gènes). En réalité, tous les
caractères héréditaires ne sont pas déterminés aussi simplement, et il est rare que la relation entre le génotype et le phénotype soit aussi directe. Mendel lui-même s’est rendu compte
qu’il ne pouvait pas expliquer les modes de transmission plus
complexes qu’il a observés dans des croisements mettant en
jeu d’autres caractères des pois ou d’autres espèces de végétaux. Malgré tout, la génétique mendélienne (quelquefois
appelée mendélisme) est incontournable, car les principes
fondamentaux de la ségrégation et de l’assortiment indépendant s’appliquent également aux modèles d’hérédité plus
complexes. Dans la présente section, nous étendrons la génétique mendélienne aux modèles d’hérédité qui n’ont pas été
décrits par Mendel.
La généralisation des lois de la génétique
mendélienne appliquées à un seul gène
L’hérédité des caractères déterminés par un seul gène s’écarte
des modèles mendéliens simples lorsque les allèles ne sont
pas complètement dominants ou récessifs, si un gène donné
a plus de deux allèles ou si un seul gène produit de multiples
phénotypes. Dans cette section, nous décrirons un exemple
de chacune de ces situations.
La gamme des relations
de dominance et de récessivité
Les allèles peuvent présenter divers degrés de dominance et
de récessivité en relation les uns avec les autres. Dans les
croisements mendéliens classiques effectués entre des pois,
les descendants de la génération F 1 ressemblaient toujours à
l’une des deux variétés parentales, en raison de la dominance complète de l’un des allèles par rapport à l’autre.
Dans de tels cas, il est impossible de distinguer le phénotype
d’un hétérozygote de celui d’un homozygote dominant.
Pour certains gènes, cependant, aucun des allèles n’est
complètement dominant, et les hybrides de la génération F 1
ont un phénotype intermédiaire, situé entre les phénotypes
des deux variétés parentales. Ce phénomène, appelé dominance incomplète, se manifeste par exemple si on croise
des gueules-de-loup (Antirrhinum majus) à fleurs rouges avec
des gueules-de-loup à fleurs blanches : tous les hybrides de la