

chapitre 12 Le cycle cellulaire 273
cycliques des divers complexes cycline-Cdk prennent une
importance majeure dans la régulation de toutes les phases
du cycle cellulaire.
Les signaux internes et externes
aux points de contrôle : des messages d’arrêt
et de démarrage
Les chercheurs sont en train d’élucider les voies de transduction reliant les signaux intracellulaires et extracellulaires aux
réponses des kinases cycline-dépendantes et autres protéines.
Ainsi, il existe un signal interne au troisième point de contrôle,
celui de la phase M. L’anaphase, l’étape de la séparation des
chromatides sœurs, ne débute pas avant que tous les chromosomes ne soient retenus par les fibres du fuseau de division
et adéquatement alignés sur la plaque équatoriale. Des
recherches ont révélé que tant que certains kinétochores ne
sont pas encore attachés à des microtubules du fuseau, les
chromatides sœurs restent ensemble, ce qui retarde l’anaphase. Ce n’est que lorsque les kinétochores de tous les chromosomes sont bien attachés au fuseau de division que le
complexe protéique régulateur s’active. Dans ce cas, la molécule régulatrice est un complexe multiprotéique nommé APC
(anaphase promoting complex), qui a lui-même été activé par
un complexe kinase cycline-dépendante. Une fois activé, l’APC
déclenche une chaîne d’événements moléculaires, dont la
lyse de la sécurine, une protéine déjà mentionnée. Cette lyse
active l’enzyme séparase, laquelle dissocie les cohésines, permettant aux chromatides sœurs de se désunir. Ce mécanisme
fait en sorte que les cellules filles n’ont pas de chromosomes
manquants ou surnuméraires.
Des études sur des cellules animales ont permis de découvrir bon nombre de facteurs externes physicochimiques susceptibles d’influer sur la division cellulaire. Par exemple, les
cellules ne se divisent pas s’il manque un nutriment essentiel
dans leur milieu de culture. (C’est comme essayer de faire
fonctionner une machine à laver automatique sans avoir branché l’entrée d’eau ; un capteur interne empêchera le cycle de se
poursuivre au-delà du moment où il faut de l’eau.) Et même
quand toutes les autres conditions sont favorables, certaines
cellules mammaliennes en culture ne se divisent qu’en présence de facteurs de croissance bien précis. Comme nous l’avons
expliqué au chapitre 11, un facteur de croissance est une
protéine libérée par certaines cellules afin de stimuler la division d’autres cellules. Les chercheurs ont découvert plus de
50 facteurs de croissance. Certains sont très spécifiques et
n’agissent que sur un type de cellules, les cellules nerveuses
par exemple, alors que d’autres peuvent agir sur plusieurs types
de cellules, comme le PDGF.
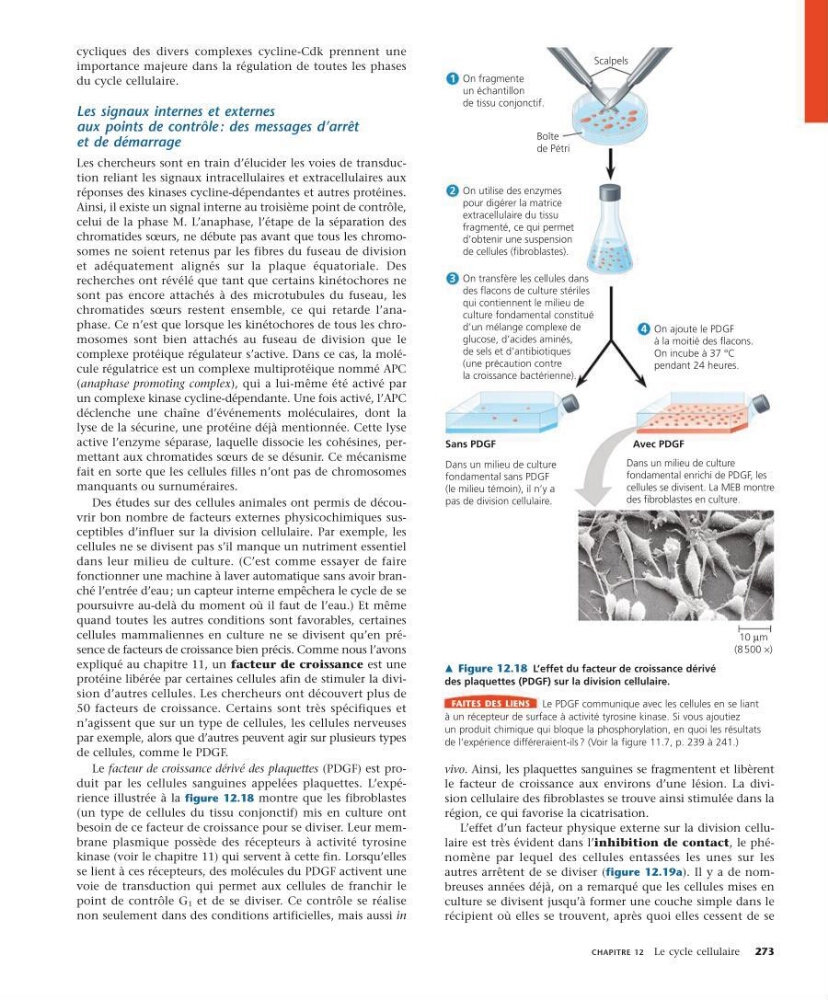
Le facteur de croissance dérivé des plaquettes (PDGF) est produit par les cellules sanguines appelées plaquettes. L’expérience illustrée à la figure 12.18 montre que les fibroblastes
(un type de cellules du tissu conjonctif) mis en culture ont
besoin de ce facteur de croissance pour se diviser. Leur membrane plasmique possède des récepteurs à activité tyrosine
kinase (voir le chapitre 11) qui servent à cette fin. Lorsqu’elles
se lient à ces récepteurs, des molécules du PDGF activent une
voie de transduction qui permet aux cellules de franchir le
point de contrôle G 1 et de se diviser. Ce contrôle se réalise
non seulement dans des conditions artificielles, mais aussi in
vivo. Ainsi, les plaquettes sanguines se fragmentent et libèrent
le facteur de croissance aux environs d’une lésion. La division cellulaire des fibroblastes se trouve ainsi stimulée dans la
région, ce qui favorise la cicatrisation.
L’effet d’un facteur physique externe sur la division cellulaire est très évident dans l’inhibition de contact, le phénomène par lequel des cellules entassées les unes sur les
autres arrêtent de se diviser (figure 12.19a). Il y a de nombreuses années déjà, on a remarqué que les cellules mises en
culture se divisent jusqu’à former une couche simple dans le
récipient où elles se trouvent, après quoi elles cessent de se
m Figure 12.18 L’effet du facteur de croissance dérivé
des plaquettes (PDGF) sur la division cellulaire.
FaItes des lIens Le PDGF communique avec les cellules en se liant
à un récepteur de surface à activité tyrosine kinase. Si vous ajoutiez
un produit chimique qui bloque la phosphorylation, en quoi les résultats
de l’expérience différeraient-ils ? (Voir la figure 11.7, p. 239 à 241.)
On transfère les cellules dans
des flacons de culture stériles
qui contiennent le milieu de
culture fondamental constitué
d’un mélange complexe de
glucose, d’acides aminés,
de sels et d’antibiotiques
(une précaution contre
la croissance bactérienne).
On fragmente
un échantillon
de tissu conjonctif.
1
2 On utilise des enzymes
pour digérer la matrice
extracellulaire du tissu
fragmenté, ce qui permet
d’obtenir une suspension
de cellules (fibroblastes).
3
On ajoute le PDGF
à la moitié des flacons.
On incube à 37 °C
pendant 24 heures.
4
Scalpels
Boîte
de Pétri
Avec PDGF
Dans un milieu de culture
fondamental enrichi de PDGF, les
cellules se divisent. La MEB montre
des fibroblastes en culture.
Sans PDGF
Dans un milieu de culture
fondamental sans PDGF
(le milieu témoin), il n’y a
pas de division cellulaire.
10 Rm
(8 500 w)