

272 DeUXiÈMe partie La cellule
L’horloge du cycle cellulaire :
les cyclines et les kinases cycline-dépendantes
Les fluctuations rythmiques de la quantité et de l’activité des
molécules régulatrices du cycle cellulaire contrôlent la vitesse
de progression des phases. Deux types de protéines interviennent : les kinases et les cyclines. Les protéines kinases sont
des enzymes qui activent ou inactivent d’autres protéines par
phosphorylation (voir le chapitre 11). Des protéines kinases
spécifiques amorcent la poursuite du cycle aux points de
contrôle G 1 et G 2 .
Un grand nombre de kinases qui régulent le cycle cellulaire se trouvent en concentration constante dans une cellule en croissance. La plupart du temps, elles sont inactives.
Pour sortir de cet état d’inactivité, elles doivent se lier à
une cycline (cette protéine doit son nom à la fluctuation
cy clique de sa concentration dans la cellule). Ces kinases
sont appelées kinases cycline-dépendantes, ou Cdk.
Leur activité varie suivant l’augmentation ou la diminution
de la concentration de leur cycline associée. (On a aussi découvert que les Cdk sont elles mêmes phosphorylées et que le
site moléculaire où se fixe le groupement phosphate déterminerait si la Cdk est activée ou inhibée.) Il existe plusieurs
types de cyclines et de Cdk, et certains types parti cipent à
d’autres fonctions que le cycle cellulaire. Les cyclines et les Cdk
intervenant dans le cycle cellulaire peuvent s’associer pour
former différents complexes. Le passage d’une phase à l’autre
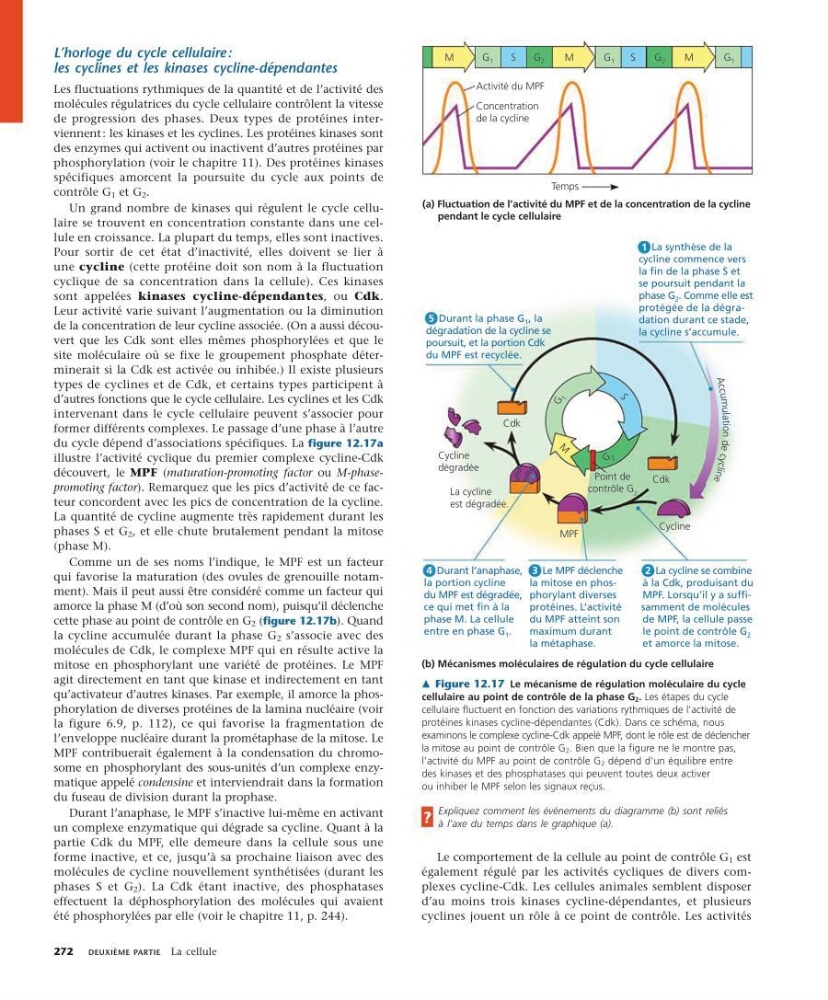
du cycle dépend d’associations spécifiques. La figure 12.17a
illustre l’activité cyclique du premier complexe cycline-Cdk
découvert, le MPF (maturation-promoting factor ou M-phasepromoting factor). Remarquez que les pics d’activité de ce facteur concordent avec les pics de concentration de la cycline.
La quantité de cycline augmente très rapidement durant les
phases S et G 2 , et elle chute brutalement pendant la mitose
(phase M).
Comme un de ses noms l’indique, le MPF est un facteur
qui favorise la maturation (des ovules de grenouille notamment). Mais il peut aussi être considéré comme un facteur qui
amorce la phase M (d’où son second nom), puisqu’il déclenche
cette phase au point de contrôle en G 2 (figure 12.17b). Quand
la cycline accumulée durant la phase G 2 s’associe avec des
molécules de Cdk, le complexe MPF qui en résulte active la
mitose en phosphorylant une variété de protéines. Le MPF
agit directement en tant que kinase et indirectement en tant
qu’activateur d’autres kinases. Par exemple, il amorce la phosphorylation de diverses protéines de la lamina nucléaire (voir
la figure 6.9, p. 112), ce qui favorise la fragmentation de
l’enveloppe nucléaire durant la prométaphase de la mitose. Le
MPF contribuerait également à la condensation du chromosome en phosphorylant des sous-unités d’un complexe enzymatique appelé condensine et interviendrait dans la formation
du fuseau de division durant la prophase.
Durant l’anaphase, le MPF s’inactive lui-même en activant
un complexe enzymatique qui dégrade sa cycline. Quant à la
partie Cdk du MPF, elle demeure dans la cellule sous une
forme inactive, et ce, jusqu’à sa prochaine liaison avec des
molécules de cycline nouvellement synthétisées (durant les
phases S et G 2 ). La Cdk étant inactive, des phosphatases
effectuent la déphosphorylation des molécules qui avaient
été phosphorylées par elle (voir le chapitre 11, p. 244).
Le comportement de la cellule au point de contrôle G 1 est
également régulé par les activités cycliques de divers complexes cycline-Cdk. Les cellules animales semblent disposer
d’au moins trois kinases cycline-dépendantes, et plusieurs
cyclines jouent un rôle à ce point de contrôle. Les activités
m Figure 12.17 Le mécanisme de régulation moléculaire du cycle
cellulaire au point de contrôle de la phase G 2 . Les étapes du cycle
cellulaire fluctuent en fonction des variations rythmiques de l’activité de
protéines kinases cycline-dépendantes (Cdk). Dans ce schéma, nous
examinons le complexe cycline-Cdk appelé MPF, dont le rôle est de déclencher
la mitose au point de contrôle G 2 . Bien que la figure ne le montre pas,
l’activité du MPF au point de contrôle G 2 dépend d’un équilibre entre
des kinases et des phosphatases qui peuvent toutes deux activer
ou inhiber le MPF selon les signaux reçus.
Expliquez comment les événements du diagramme (b) sont reliés
à l’axe du temps dans le graphique (a).
?
G 1
S
G 2
Activité du MPF
Concentration
de la cycline
Temps
(a) Fluctuation de l’activité du MPF et de la concentration de la cycline
pendant le cycle cellulaire
M
G 1
S
G 1
G 2
M
M
A cc um ulation de
cy
cl
in
e
Cdk
Cycline
dégradée
La cycline
est dégradée.
Cdk
(b) Mécanismes moléculaires de régulation du cycle cellulaire
Cycline
MPF
Point de
contrôle G 2
M
G 2
G
1
S
Durant la phase G 1 , la
dégradation de la cycline se
poursuit, et la portion Cdk
du MPF est recyclée.
5
1
La cycline se combine
à la Cdk, produisant du
MPF. Lorsqu’il y a suffisamment de molécules
de MPF, la cellule passe
le point de contrôle G 2
et amorce la mitose.
2
Le MPF déclenche
la mitose en phosphorylant diverses
protéines. L’activité
du MPF atteint son
maximum durant
la métaphase.
3
Durant l’anaphase,
la portion cycline
du MPF est dégradée,
ce qui met fin à la
phase M. La cellule
entre en phase G 1 .
4
La synthèse de la
cycline commence vers
la fin de la phase S et
se poursuit pendant la
phase G 2 . Comme elle est
protégée de la dégradation durant ce stade,
la cycline s’accumule.