

220 DeUXiÈMe partie La cellule
d’électrons située dans une membrane achemine des protons
à travers celle-ci à mesure que des électrons sont transférés à
des transporteurs de plus en plus électronégatifs. C’est ainsi
que la chaîne de transport d’électrons convertit l’énergie
des réactions d’oxydoréduction en force protonmotrice, c’està-dire en énergie potentielle emmagasinée sous la forme
d’un gradient de H
1
dans la membrane. Cette dernière renferme une ATP synthase qui couple la diffusion des protons
à la phosphorylation de l’ADP. Certains des transporteurs
d’électrons (dont les protéines contenant du fer et appelées
cytochromes) qui se trouvent dans les chloroplastes et dans
les mitochondries sont similaires. Les ATP synthases de ces
deux organites se ressemblent également beaucoup. Il existe
cependant des différences importantes entre la phosphorylation oxydative, qui a lieu dans les mitochondries, et la photophosphorylation, qui se produit dans les chloroplastes. Dans
les mitochondries, les électrons riches en énergie véhiculés
par la chaîne de transport proviennent de l’oxydation de
molécules organiques, tandis que dans les chloroplastes la
source d’électrons est l’eau. Les chloroplastes, eux, n’ont pas
à oxyder des molécules provenant de nutriments pour produire de l’ATP ; leurs photosystèmes captent l’énergie lumineuse et l’utilisent pour acheminer des électrons au sommet
de la chaîne de transport. Autrement dit, les mitochondries
transfèrent à l’ATP l’énergie chimique des molécules nutritives, tandis que les chloroplastes transforment l’énergie
lumineuse en énergie chimique dans l’ATP. Il s’agit là d’une
distinction importante.
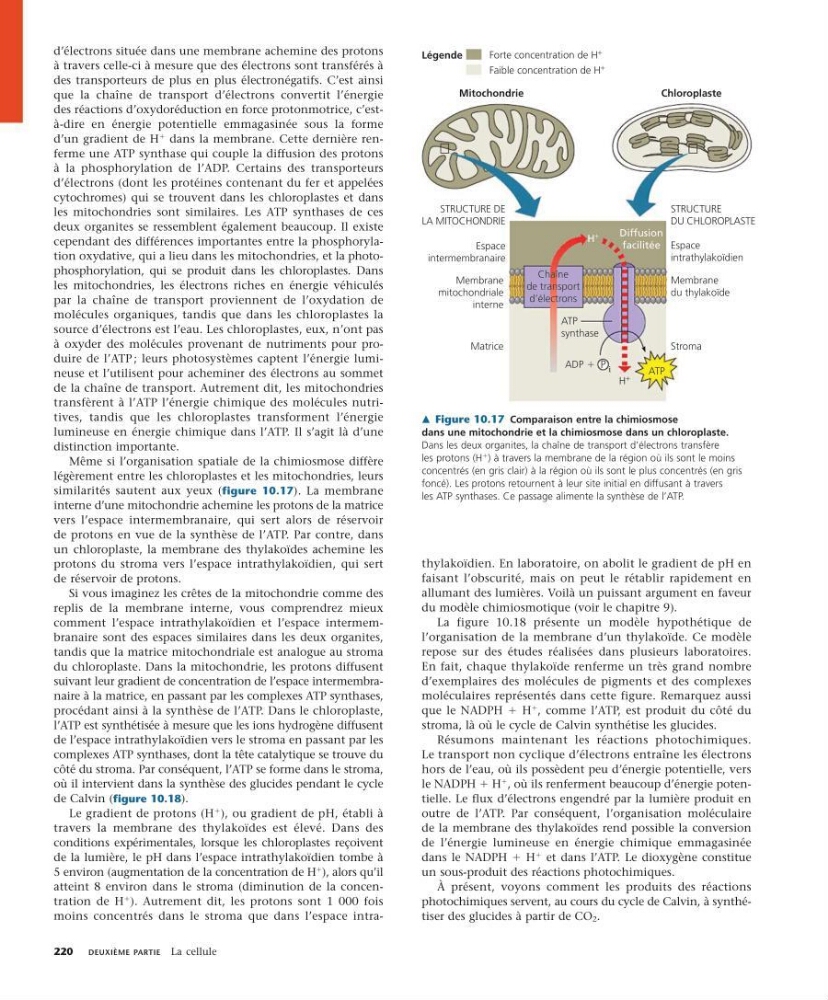
Même si l’organisation spatiale de la chimiosmose diffère
légèrement entre les chloroplastes et les mitochondries, leurs
similarités sautent aux yeux (figure 10.17). La membrane
interne d’une mitochondrie achemine les protons de la matrice
vers l’espace intermembranaire, qui sert alors de réservoir
de protons en vue de la synthèse de l’ATP. Par contre, dans
un chloroplaste, la membrane des thylakoïdes achemine les
protons du stroma vers l’espace intrathylakoïdien, qui sert
de réservoir de protons.
Si vous imaginez les crêtes de la mitochondrie comme des
replis de la membrane interne, vous comprendrez mieux
comment l’espace intrathylakoïdien et l’espace intermembranaire sont des espaces similaires dans les deux organites,
tandis que la matrice mitochondriale est analogue au stroma
du chloroplaste. Dans la mitochondrie, les protons diffusent
suivant leur gradient de concentration de l’espace intermembranaire à la matrice, en passant par les complexes ATP synthases,
procédant ainsi à la synthèse de l’ATP. Dans le chloroplaste,
l’ATP est synthétisée à mesure que les ions hydrogène diffusent
de l’espace intrathylakoïdien vers le stroma en passant par les
complexes ATP synthases, dont la tête catalytique se trouve du
côté du stroma. Par conséquent, l’ATP se forme dans le stroma,
où il intervient dans la synthèse des glucides pendant le cycle
de Calvin (figure 10.18).
Le gradient de protons (H
1
), ou gradient de pH, établi à
travers la membrane des thylakoïdes est élevé. Dans des
conditions expérimentales, lorsque les chloroplastes reçoivent
de la lumière, le pH dans l’espace intrathylakoïdien tombe à
5 environ (augmentation de la concentration de H
1
), alors qu’il
atteint 8 environ dans le stroma (diminution de la concentration de H
1
). Autrement dit, les protons sont 1 000 fois
moins concentrés dans le stroma que dans l’espace intrathylakoïdien. En laboratoire, on abolit le gradient de pH en
faisant l’obscurité, mais on peut le rétablir rapidement en
allumant des lumières. Voilà un puissant argument en faveur
du modèle chimiosmotique (voir le chapitre 9).
La figure 10.18 présente un modèle hypothétique de
l’orga nisation de la membrane d’un thylakoïde. Ce modèle
repose sur des études réalisées dans plusieurs laboratoires.
En fait, chaque thylakoïde renferme un très grand nombre
d’exemplaires des molécules de pigments et des complexes
moléculaires représentés dans cette figure. Remarquez aussi
que le NADPH 1 H
1
, comme l’ATP, est produit du côté du
stroma, là où le cycle de Calvin synthétise les glucides.
Résumons maintenant les réactions photochimiques.
Le transport non cyclique d’électrons entraîne les électrons
hors de l’eau, où ils possèdent peu d’énergie potentielle, vers
le NADPH 1 H
1
, où ils renferment beaucoup d’énergie potentielle. Le flux d’électrons engendré par la lumière produit en
outre de l’ATP. Par conséquent, l’organisation moléculaire
de la membrane des thylakoïdes rend possible la conversion
de l’énergie lumineuse en énergie chimique emmagasinée
dans le NADPH 1 H
1
et dans l’ATP. Le dioxygène constitue
un sous-produit des réactions photochimiques.
À présent, voyons comment les produits des réactions
photochimiques servent, au cours du cycle de Calvin, à synthétiser des glucides à partir de CO 2 .
ATP
ADP ϩ
H +
H +
Diffusion
facilitée
Mitochondrie
Chloroplaste
Espace
intrathylakoïdien
Membrane
du thylakoïde
Stroma
ATP
synthase
Matrice
Membrane
mitochondriale
interne
Espace
intermembranaire
STRUCTURE DE
LA MITOCHONDRIE
STRUCTURE
DU CHLOROPLASTE
Forte concentration de H +
P i
Faible concentration de H +
Chaîne
de transport
d’électrons
Légende
m Figure 10.17 Comparaison entre la chimiosmose
dans une mitochondrie et la chimiosmose dans un chloroplaste.
Dans les deux organites, la chaîne de transport d’électrons transfère
les protons (H
1
) à travers la membrane de la région où ils sont le moins
concentrés (en gris clair) à la région où ils sont le plus concentrés (en gris
foncé). Les protons retournent à leur site initial en diffusant à travers
les ATP synthases. Ce passage alimente la synthèse de l’ATP.