

chapitre 8 Introduction au métabolisme 177
cette protéine qui ont permis d’élucider le principe de la coopérativité. L’hémoglobine se compose de quatre sousunités,
chacune possédant un site de liaison de l’oxygène (voir la
figure 5.20, p. 90). La liaison d’une molécule d’oxygène à l’un
de ces sites accroît l’affinité avec l’oxygène des autres sites
de liaison. Par conséquent, là où l’oxygène est présent en
grande quantité, comme dans les poumons ou les branchies,
plus les sites de liaison sont saturés, plus l’affinité de l’hémoglobine avec l’oxygène est forte. Inversement, dans les tissus
où l’oxygène se trouve en faible quantité, la libération de
chaque molécule d’oxygène réduit l’affinité des autres sites
de liaison avec l’oxygène, de sorte que l’oxygène est libéré là
où il est le plus nécessaire. La coopérativité fonctionne de la
même manière dans ces structures multisousunitaires que
sont les enzymes étudiées jusqu’ici.
Les régulateurs allostériques
Bien qu’elle soit probablement assez répandue, la régulation
allostérique n’a été démontrée que chez un certain nombre
d’enzymes métaboliques connues. À vrai dire, les molécules
régulatrices allostériques sont difficiles à caractériser, notamment parce qu’elles ont tendance à se lier à l’enzyme présentant
une faible affinité, ce qui les rend difficiles à isoler. Toutefois,
les sociétés pharmaceutiques se sont intéressées récemment
aux régulateurs allostériques. Ces molécules sont en effet de
meilleures candidates pour la mise au point de médicaments
régulateurs de l’activité enzymatique, car elles ont une plus
grande spécificité à l’égard de telle ou telle enzyme et sont,
de ce fait, plus intéressantes que les inhibiteurs, qui se lient au
site actif. (Un site actif peut être similaire au site actif d’une
autre enzyme reliée, tandis que les sites régulateurs allostériques semblent assez différents d’une enzyme à l’autre.)
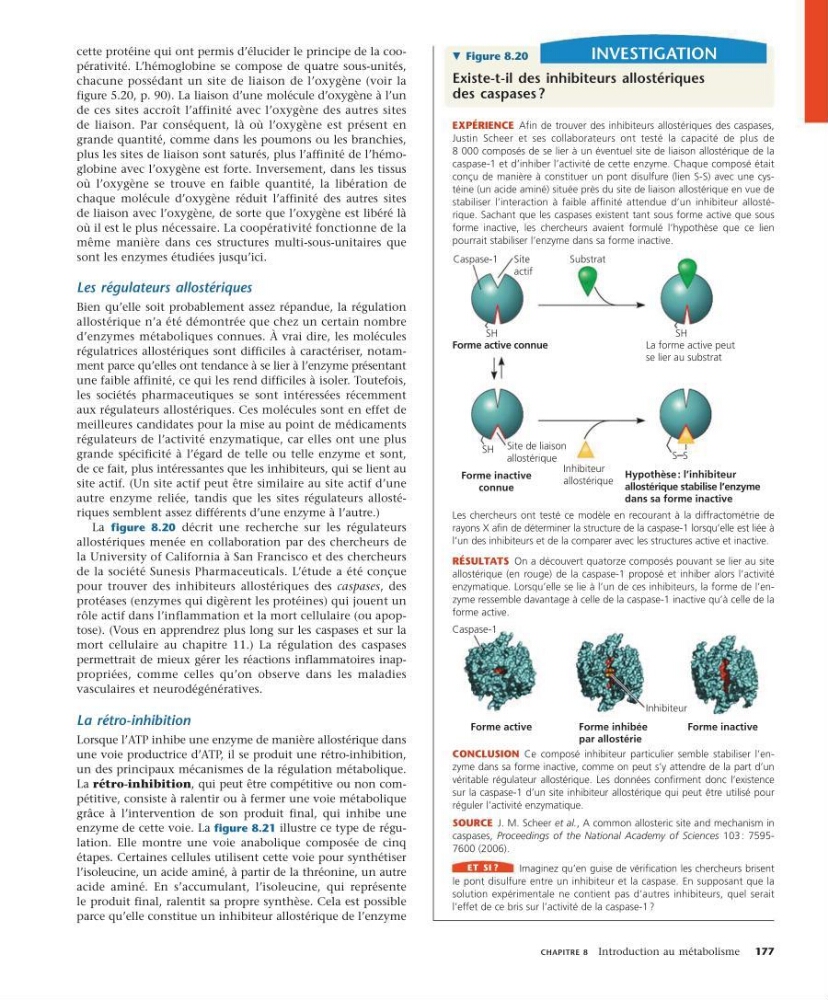
La figure 8.20 décrit une recherche sur les régulateurs
allostériques menée en collaboration par des chercheurs de
la University of California à San Francisco et des chercheurs
de la société Sunesis Pharmaceuticals. L’étude a été conçue
pour trouver des inhibiteurs allostériques des caspases, des
protéases (enzymes qui digèrent les protéines) qui jouent un
rôle actif dans l’inflammation et la mort cellulaire (ou apoptose). (Vous en apprendrez plus long sur les caspases et sur la
mort cellulaire au chapitre 11.) La régulation des caspases
permettrait de mieux gérer les réactions inflammatoires inappropriées, comme celles qu’on observe dans les maladies
vasculaires et neurodégénératives.
La rétro-inhibition
Lorsque l’ATP inhibe une enzyme de manière allostérique dans
une voie productrice d’ATP, il se produit une rétroinhibition,
un des principaux mécanismes de la régulation métabolique.
La rétro-inhibition, qui peut être compétitive ou non compétitive, consiste à ralentir ou à fermer une voie métabolique
grâce à l’intervention de son produit final, qui inhibe une
enzyme de cette voie. La figure 8.21 illustre ce type de régulation. Elle montre une voie anabolique composée de cinq
étapes. Certaines cellules utilisent cette voie pour synthétiser
l’isoleucine, un acide aminé, à partir de la thréonine, un autre
acide aminé. En s’accumulant, l’isoleucine, qui représente
le produit final, ralentit sa propre synthèse. Cela est possible
parce qu’elle constitue un inhibiteur allostérique de l’enzyme
. Figure 8.20
existetil des inhibiteurs allostériques
des caspases ?
eXpérIenCe Afindetrouverdesinhibiteursallostériquesdescaspases,Justin
téine(unacideaminé)situéeprèsdusitedeliaisonallostériqueenvuedestabiliser
rique.Sachantquelescaspasesexistenttantsousformeactivequesousforme inactive, les chercheurs avaient formulé l’hypothèse que ce lienpourraitstabiliserl’enzymedanssaformeinactive.
Caspase-1
Site
actif
Site de liaison
allostérique
Inhibiteur
allostérique
Substrat
Forme active connue
Forme inactive
connue
Hypothèse : l’inhibiteur
allostérique stabilise l’enzyme
dans sa forme inactive
SH
SH
S S
La forme active peut
se lier au substrat
SH
rayonsXafindedéterminerlastructuredelacaspase-1lorsqu’elleestliéeàl’undesinhibiteursetdelacompareraveclesstructuresactiveetinactive.
résultats Onadécouvertquatorzecomposéspouvantselierausiteallostérique
formeactive.Caspase-1
Inhibiteur
Forme active
Forme inhibée
par allostérie
Forme inactive
zymedanssaformeinactive,commeonpeuts’yattendredelapartd’unvéritable
surlacaspase-1d’unsiteinhibiteurallostériquequipeutêtreutilisépourrégulerl’activitéenzymatique.
sourCe J.M.Scheeret al.,Acommonallostericsiteandmechanismincaspases, Proceedings of the National Academy of Sciences 103: 75957600(2006).
et sI ?
lepontdisulfureentreuninhibiteuretlacaspase.Ensupposantquelasolution
l’effetdecebrissurl’activitédelacaspase-1?investiGation