

chapitre 7 Structure et fonction des membranes 151
protéine est transporté de l’autre côté de la membrane. Il
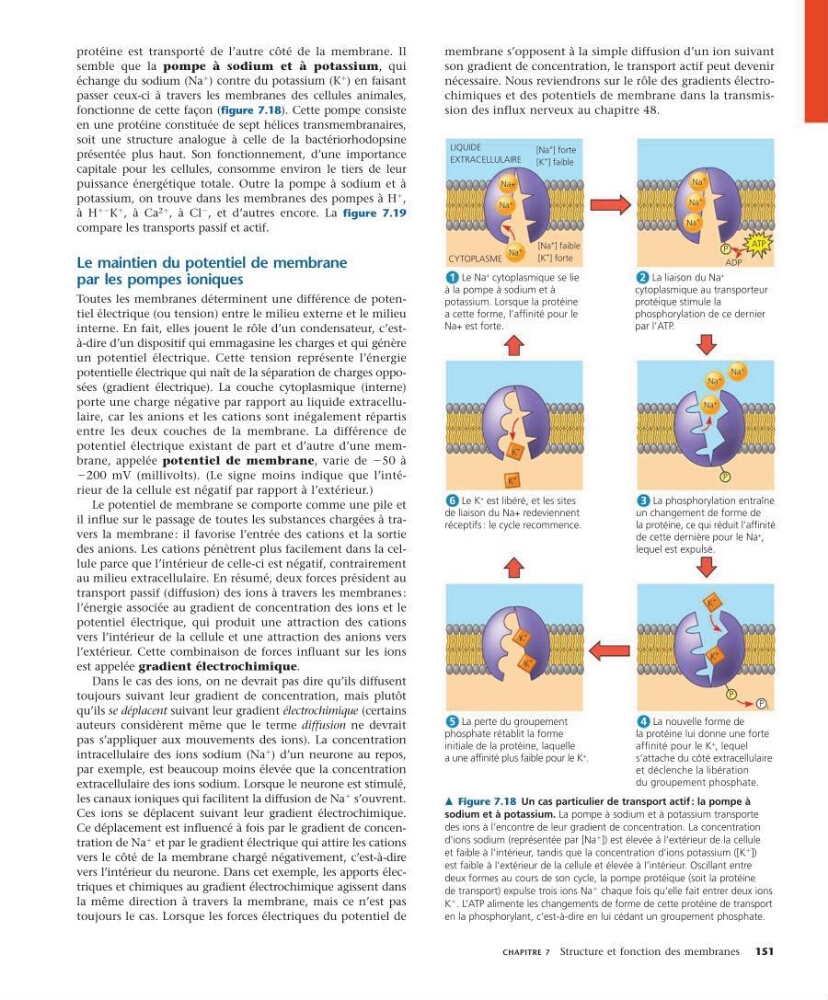
semble que la pompe à sodium et à potassium, qui
échange du sodium (Na
1
) contre du potassium (K
1
) en faisant
passer ceuxci à travers les membranes des cellules animales,
fonctionne de cette façon (figure 7.18). Cette pompe consiste
en une protéine constituée de sept hélices transmembranaires,
soit une structure analogue à celle de la bactériorhodopsine
présentée plus haut. Son fonctionnement, d’une importance
capitale pour les cellules, consomme environ le tiers de leur
puissance énergétique totale. Outre la pompe à sodium et à
pota ssium, on trouve dans les membranes des pompes à H
1
,
à H
1
K
1
, à Ca
21
, à Cl
, et d’autres encore. La figure 7.19
compare les transports passif et actif.
Le maintien du potentiel de membrane
par les pompes ioniques
Toutes les membranes déterminent une différence de potentiel électrique (ou tension) entre le milieu externe et le milieu
interne. En fait, elles jouent le rôle d’un condensateur, c’estàdire d’un dispositif qui emmagasine les charges et qui génère
un potentiel électrique. Cette tension représente l’énergie
potentielle électrique qui naît de la séparation de charges opposées (gradient électrique). La couche cytoplasmique (interne)
porte une charge négative par rapport au liquide extracellulaire, car les anions et les cations sont inégalement répartis
entre les deux couches de la membrane. La différence de
potentiel électrique existant de part et d’autre d’une membrane, appelée potentiel de membrane, varie de 50 à
200 mV (millivolts). (Le signe moins indique que l’intérieur de la cellule est négatif par rapport à l’extérieur.)
Le potentiel de membrane se comporte comme une pile et
il influe sur le passage de toutes les substances chargées à travers la membrane : il favorise l’entrée des cations et la sortie
des anions. Les cations pénètrent plus facilement dans la cellule parce que l’intérieur de celleci est négatif, contrairement
au milieu extracellulaire. En résumé, deux forces président au
transport passif (diffusion) des ions à travers les membranes :
l’énergie associée au gradient de concentration des ions et le
potentiel électrique, qui produit une attraction des cations
vers l’intérieur de la cellule et une attraction des anions vers
l’extérieur. Cette combinaison de forces influant sur les ions
est appelée gradient électrochimique.
Dans le cas des ions, on ne devrait pas dire qu’ils diffusent
toujours suivant leur gradient de concentration, mais plutôt
qu’ils se déplacent suivant leur gradient électrochimique (certains
auteurs considèrent même que le terme diffusion ne devrait
pas s’appliquer aux mouvements des ions). La concentration
intracellulaire des ions sodium (Na
1
) d’un neurone au repos,
par exemple, est beaucoup moins élevée que la concentration
extracellulaire des ions sodium. Lorsque le neurone est stimulé,
les canaux ioniques qui facilitent la diffusion de Na
1
s’ouvrent.
Ces ions se déplacent suivant leur gradient électrochimique.
Ce déplacement est influencé à fois par le gradient de concentration de Na
1
et par le gradient électrique qui attire les cations
vers le côté de la membrane chargé négativement, c’estàdire
vers l’intérieur du neurone. Dans cet exemple, les apports électriques et chimiques au gradient électrochimique agissent dans
la même direction à travers la membrane, mais ce n’est pas
toujours le cas. Lorsque les forces électriques du potentiel de
membrane s’opposent à la simple diffusion d’un ion suivant
son gradient de concentration, le transport actif peut devenir
nécessaire. Nous reviendrons sur le rôle des gradients électrochimiques et des potentiels de membrane dans la transmission des influx nerveux au chapitre 48.
m Figure 7.18 Un cas particulier de transport actif : la pompe à
sodium et à potassium. La pompe à sodium et à potassium transporte
des ions à l’encontre de leur gradient de concentration. La concentration
d’ions sodium (représentée par [Na
1
]) est élevée à l’extérieur de la cellule
et faible à l’intérieur, tandis que la concentration d’ions potassium ([K
1
])
est faible à l’extérieur de la cellule et élevée à l’intérieur. Oscillant entre
deux formes au cours de son cycle, la pompe protéique (soit la protéine
de transport) expulse trois ions Na
1 chaque fois qu’elle fait entrer deux ions
K
1
. L’ATP alimente les changements de forme de cette protéine de transport
en la phosphorylant, c’est-à-dire en lui cédant un groupement phosphate.
La liaison du Na
cytoplasmique au transporteur
protéique stimule la
phosphorylation de ce dernier
par l’ATP.
2
LIQUIDE
EXTRACELLULAIRE
CYTOPLASME
[Na
] forte
[K
] faible
[Na
] faible
[K
] forte
Le Na
cytoplasmique se lie
à la pompe à sodium et à
potassium. Lorsque la protéine
a cette forme, l’affinité pour le
Na
est forte.
1
Le K
est libéré, et les sites
de liaison du Na
redeviennent
réceptifs : le cycle recommence.
6
La phosphorylation entraîne
un changement de forme de
la protéine, ce qui réduit l’affinité
de cette dernière pour le Na
,
lequel est expulsé.
3
La perte du groupement
phosphate rétablit la forme
initiale de la protéine, laquelle
a une affinité plus faible pour le K
.
5
La nouvelle forme de
la protéine lui donne une forte
affinité pour le K
, lequel
s’attache du côté extracellulaire
et déclenche la libération
du groupement phosphate.
4
P
P
P
P i
Na
Na
Na
Na
Na
Na
Na
Na
Na
ATP
ADP
K
K
K
K
K
K