

chapitre 7 Structure et fonction des membranes 143
L’évolution des différences
dans la composition lipidique membranaire
évolutIon
Les différences de composition lipidique de
la membrane cellulaire de nombreuses espèces semblent être
le fruit de l’évolution – des adaptations qui maintiennent la
fluidité membranaire requise par telles ou telles conditions
environnementales. Ainsi, les poissons qui vivent dans des
eaux très froides sont dotés de membranes comportant une
forte proportion de queues hydrocarbonées insa turées qui
préservent la fluidité membranaire (voir la figure 7.8a). Par
contre, les Bactéries et les Archées vivant dans des sources thermales et des geysers, dont la température dépasse parfois les
90 °C, possèdent des membranes comportant des lipides inhabituels, capables d’éviter la fluidité excessive qu’entraînerait
normalement une telle chaleur.
Qui plus est, les organismes exposés à des variations de température ont acquis au fil de l’évolution la capacité de modifier
la composition lipidique de leurs membranes cellulaires. Ainsi,
chez les Végétaux qui tolèrent les grands froids, comme le blé
d’hiver (Triticum æstivum), le pourcentage de phosphoglycérolipides insaturés augmente à l’automne, ce qui empêche
les membranes cellulaires de se solidifier durant l’hiver. Dans les
régions côtières du Québec, les Crustacés vivant dans des
eaux traversées par le courant froid du Labrador concentrent
davantage de cholestérol dans leurs membranes cellulaires
afin d’en préserver la souplesse. Certaines Bactéries et Archées
peuvent également modifier le pourcentage de phosphoglycérolipides insaturés de leurs membranes cellulaires selon la
température à laquelle elles sont exposées durant leur croissance. Dans l’ensemble, la sélection naturelle semble avoir
favorisé les organismes dont les membranes contiennent une
combinaison de lipides qui assure la fluidité membranaire
requise par leur environnement.
Les protéines membranaires et leurs fonctions
Nous arrivons maintenant à la notion de mosaïque telle qu’elle
s’entend dans le modèle de la mosaïque fluide. Comme une
mosaïque, une membrane est un assemblage de diverses protéines insérées dans la matrice fluide d’une bicouche de phosphoglycérolipides (voir la figure 7.5). La membrane plasmique
et les membranes des différents organites possèdent chacune
leur propre ensemble de protéines et celuici varie selon le type
de cellule. Par exemple, la membrane plasmique des globules
rouges contient plus de 50 types de protéines et il en reste sans
doute bien d’autres à répertorier. Les phosphoglycérolipides
forment la trame de la membrane, mais ce sont les protéines
qui en déterminent la plupart des fonctions spécifiques.
La figure 7.5 montre qu’il existe deux grandes populations
de protéines membranaires : les protéines intramembranaires
et les protéines périphériques. Les protéines intramembranaires sont insérées dans la membrane ; elles s’y enfoncent
assez profondément pour que leurs parties hydrophobes
soient entourées par les parties hydrocarbonées des lipides.
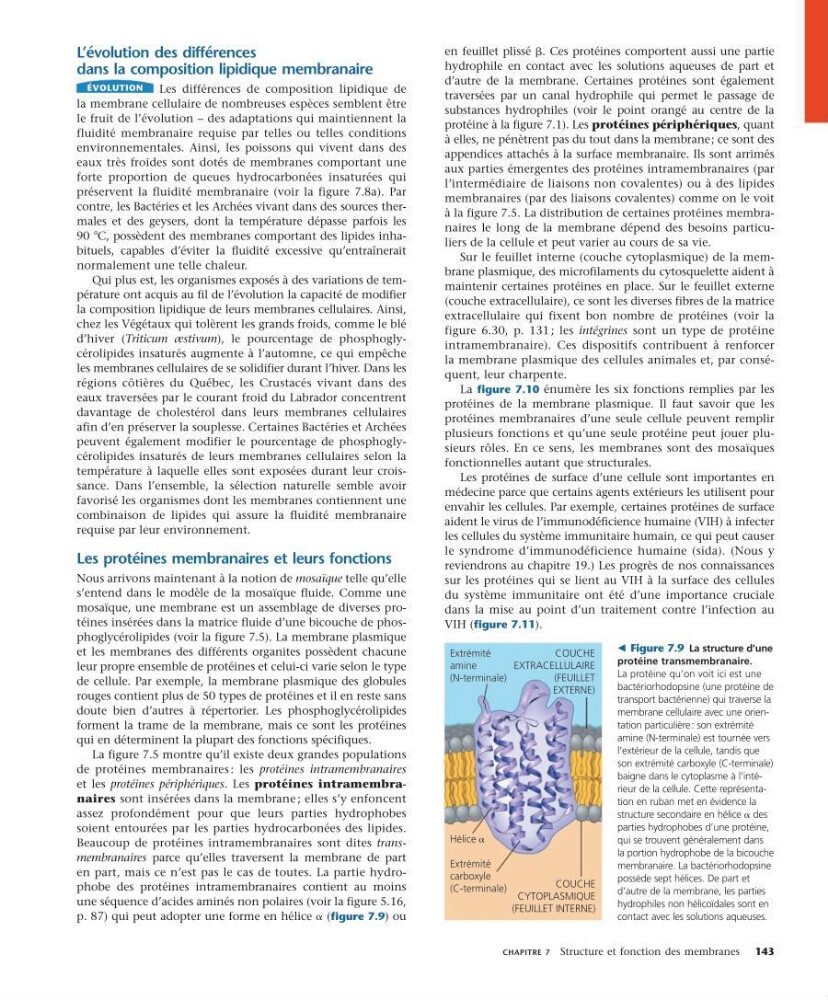
Beaucoup de protéines intramembranaires sont dites transmembranaires parce qu’elles traversent la membrane de part
en part, mais ce n’est pas le cas de toutes. La partie hydrophobe des protéines intramembranaires contient au moins
une séquence d’acides aminés non polaires (voir la figure 5.16,
p. 87) qui peut adopter une forme en hélice a (figure 7.9) ou
en feuillet plissé b. Ces protéines comportent aussi une partie
hydrophile en contact avec les solutions aqueuses de part et
d’autre de la membrane. Certaines protéines sont également
traversées par un canal hydrophile qui permet le passage de
substances hydrophiles (voir le point orangé au centre de la
protéine à la figure 7.1). Les protéines périphériques, quant
à elles, ne pénètrent pas du tout dans la membrane ; ce sont des
appendices attachés à la surface membranaire. Ils sont arrimés
aux parties émergentes des protéines intramembranaires (par
l’intermédiaire de liaisons non covalentes) ou à des lipides
membranaires (par des liaisons covalentes) comme on le voit
à la figure 7.5. La distribution de certaines protéines membranaires le long de la membrane dépend des besoins particuliers de la cellule et peut varier au cours de sa vie.
Sur le feuillet interne (couche cytoplasmique) de la membrane plasmique, des microfilaments du cytosquelette aident à
maintenir certaines protéines en place. Sur le feuillet externe
(couche extracellulaire), ce sont les diverses fibres de la matrice
extracellulaire qui fixent bon nombre de protéines (voir la
figure 6.30, p. 131 ; les intégrines sont un type de protéine
intramembranaire). Ces dispositifs contribuent à renforcer
la membrane plasmique des cellules animales et, par conséquent, leur charpente.
La figure 7.10 énumère les six fonctions remplies par les
protéines de la membrane plasmique. Il faut savoir que les
protéines membranaires d’une seule cellule peuvent remplir
plusieurs fonctions et qu’une seule protéine peut jouer plusieurs rôles. En ce sens, les membranes sont des mosaïques
fonctionnelles autant que structurales.
Les protéines de surface d’une cellule sont importantes en
médecine parce que certains agents extérieurs les utilisent pour
envahir les cellules. Par exemple, certaines protéines de surface
aident le virus de l’immunodéficience humaine (VIH) à infecter
les cellules du système immunitaire humain, ce qui peut causer
le syndrome d’immunodéficience humaine (sida). (Nous y
reviendrons au chapitre 19.) Les progrès de nos connaissances
sur les protéines qui se lient au VIH à la surface des cellules
du système immunitaire ont été d’une importance cruciale
dans la mise au point d’un traitement contre l’infection au
VIH (figure 7.11).
Figure 7.9 La structure d’une
protéine transmembranaire.
La protéine qu’on voit ici est une
bactériorhodopsine (une protéine de
transport bactérienne) qui traverse la
membrane cellulaire avec une orientation particulière : son extrémité
amine (N-terminale) est tournée vers
l’extérieur de la cellule, tandis que
son extrémité carboxyle (C-terminale)
baigne dans le cytoplasme à l’intérieur de la cellule. Cette représentation en ruban met en évidence la
structure secondaire en hélice a des
parties hydrophobes d’une protéine,
qui se trouvent généralement dans
la portion hydrophobe de la bicouche
membranaire. La bactériorhodopsine
possède sept hélices. De part et
d’autre de la membrane, les parties
hydrophiles non hélicoïdales sont en
contact avec les solutions aqueuses.
Hélice ␣
Extrémité
amine
(N-terminale)
Extrémité
carboxyle
(C-terminale)
COUCHE
EXTRACELLULAIRE
(FEUILLET
EXTERNE)
COUCHE
CYTOPLASMIQUE
(FEUILLET INTERNE)