

128 DeUXiÈMe partie La cellule
la cellule. Dans d’autres types de cellules également, des microfilaments s’associent à la myosine : ils reproduisent en miniature, mais de façon plus rudimentaire, leur disposition dans
les cellules musculaires. Ces agrégats d’actine et de myosine
sont à l’origine des contractions cellulaires localisées. Quand
une cellule animale se divise, par exemple, la contraction
d’une ceinture de microfilaments située à l’équateur de la cellule accentue le sillon de division.
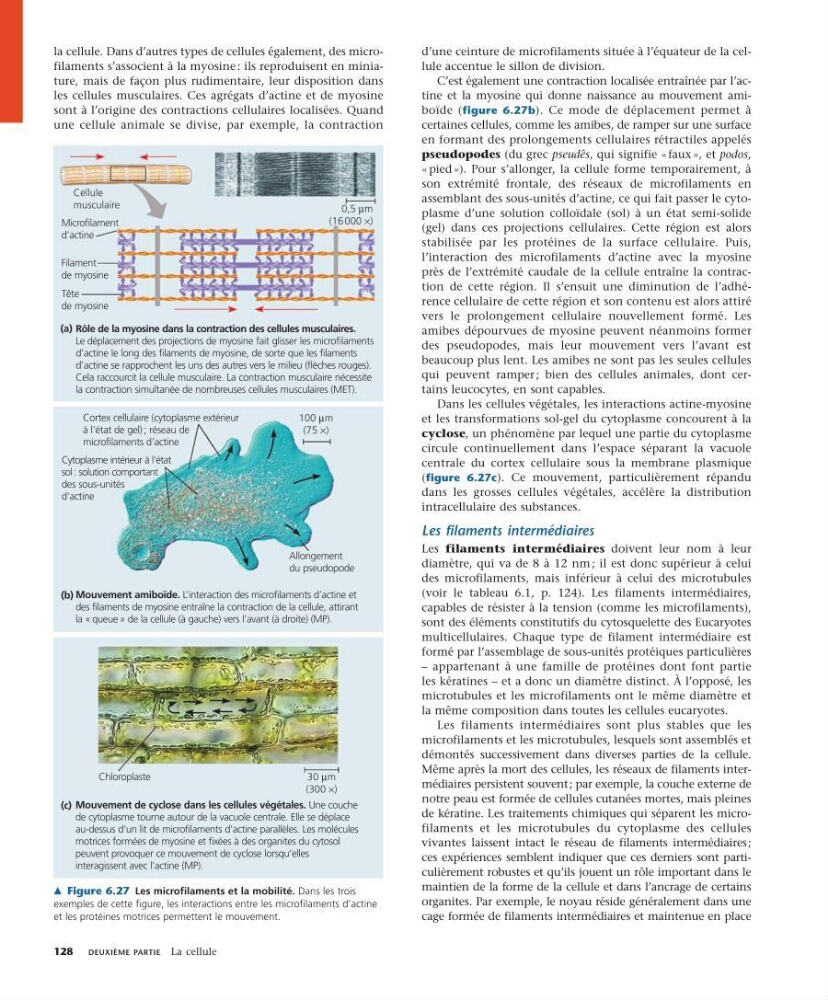
C’est également une contraction localisée entraînée par l’actine et la myosine qui donne naissance au mouvement amiboïde (figure 6.27b). Ce mode de déplacement permet à
certaines cellules, comme les amibes, de ramper sur une surface
en formant des prolongements cellulaires rétractiles appelés
pseudopodes (du grec pseudês, qui signifie « faux », et podos,
« pied »). Pour s’allonger, la cellule forme temporairement, à
son extrémité frontale, des réseaux de microfilaments en
assemblant des sous-unités d’actine, ce qui fait passer le cytoplasme d’une solution colloïdale (sol) à un état semi-solide
(gel) dans ces projections cellulaires. Cette région est alors
stabilisée par les protéines de la surface cellulaire. Puis,
l’inter action des microfilaments d’actine avec la myosine
près de l’extrémité caudale de la cellule entraîne la contraction de cette région. Il s’ensuit une diminution de l’adhérence cellulaire de cette région et son contenu est alors attiré
vers le prolongement cellulaire nouvellement formé. Les
amibes dépourvues de myosine peuvent néanmoins former
des pseudopodes, mais leur mouvement vers l’avant est
beaucoup plus lent. Les amibes ne sont pas les seules cellules
qui peuvent ramper ; bien des cellules animales, dont certains leucocytes, en sont capables.
Dans les cellules végétales, les interactions actine-myosine
et les transformations sol-gel du cytoplasme concourent à la
cyclose, un phénomène par lequel une partie du cytoplasme
circule continuellement dans l’espace séparant la vacuole
centrale du cortex cellulaire sous la membrane plasmique
(figure 6.27c). Ce mouvement, particulièrement répandu
dans les grosses cellules végétales, accélère la distribution
intracellulaire des substances.
Les filaments intermédiaires
Les filaments intermédiaires doivent leur nom à leur
diamètre, qui va de 8 à 12 nm ; il est donc supérieur à celui
des microfilaments, mais inférieur à celui des microtubules
(voir le tableau 6.1, p. 124). Les filaments intermédiaires,
capables de résister à la tension (comme les microfilaments),
sont des éléments constitutifs du cytosquelette des Eucaryotes
multicellulaires. Chaque type de filament intermédiaire est
formé par l’assemblage de sous-unités protéiques particulières
– appartenant à une famille de protéines dont font partie
les kératines – et a donc un diamètre distinct. À l’opposé, les
microtubules et les microfilaments ont le même diamètre et
la même composition dans toutes les cellules eucaryotes.
Les filaments intermédiaires sont plus stables que les
microfilaments et les microtubules, lesquels sont assemblés et
démontés successivement dans diverses parties de la cellule.
Même après la mort des cellules, les réseaux de filaments intermédiaires persistent souvent ; par exemple, la couche externe de
notre peau est formée de cellules cutanées mortes, mais pleines
de kératine. Les traitements chimiques qui séparent les microfilaments et les microtubules du cytoplasme des cellules
vivantes laissent intact le réseau de filaments intermédiaires ;
ces expériences semblent indiquer que ces derniers sont particulièrement robustes et qu’ils jouent un rôle important dans le
maintien de la forme de la cellule et dans l’ancrage de certains
organites. Par exemple, le noyau réside généralement dans une
cage formée de filaments intermédiaires et maintenue en place
Allongement
du pseudopode
Cytoplasme intérieur à l’état
sol : solution comportant
des sous-unités
d’actine
Chloroplaste
(a)
Microfilament
d’actine
Filament
de myosine
Cortex cellulaire (cytoplasme extérieur
à l’état de gel) ; réseau de
microfilaments d’actine
Cellule
musculaire
Tête
de myosine
(b)
0,5 Rm
(16 000 w)
30 Rm
(300 w)
100 Rm
(75 w)
Mouvement amiboïde. L’interaction des microfilaments d’actine et
des filaments de myosine entraîne la contraction de la cellule, attirant
la « queue » de la cellule (à gauche) vers l’avant (à droite) (MP).
Rôle de la myosine dans la contraction des cellules musculaires.
Le déplacement des projections de myosine fait glisser les microfilaments
d’actine le long des filaments de myosine, de sorte que les filaments
d’actine se rapprochent les uns des autres vers le milieu (flèches rouges).
Cela raccourcit la cellule musculaire. La contraction musculaire nécessite
la contraction simultanée de nombreuses cellules musculaires (MET).
(c) Mouvement de cyclose dans les cellules végétales. Une couche
de cytoplasme tourne autour de la vacuole centrale. Elle se déplace
au-dessus d’un lit de microfilaments d’actine parallèles. Les molécules
motrices formées de myosine et fixées à des organites du cytosol
peuvent provoquer ce mouvement de cyclose lorsqu’elles
interagissent avec l’actine (MP).
m Figure 6.27 Les microfilaments et la mobilité. Dans les trois
exemples de cette figure, les interactions entre les microfilaments d’actine
et les protéines motrices permettent le mouvement.