

388
CINÉTIQUE ENZYMATIQUE
hypothèse ne doive être faite sur la pureté de la préparation, et elle reste valable en
présence de certaines complications telles que la capacité de certains enzymes à
fixer le substrat sans catalyser la réaction (TOPHAM et al., 2000). L'idée essentielle
est que les méthodes habituelles d'état stationnaire fournissent facilement des
mesures des paramètres tels que KV
k E
mA = 1
0
[] qui comprend la concentration
d'enzyme [] E 0 , alors que les méthodes pré-stationnaires, par exemple les graphiques décrits à la fin du § 11.4.1, fournissent les quantités correspondantes sans
le facteur [] E 0 ; en divisant l'un par l'autre, il est donc possible de calculer la
véritable molarité de l'enzyme (BENDER et al., 1966 ; REINER, 1969).
Dans les réactions plusieurs substrats (autres que les réactions d'hydrolyse), il est
possible d'empêcher l'enzyme d'être recyclé en omettant un des substrats du mélange réactionnel. Cela est particulièrement utile pour les enzymes qui suivent un
mécanisme à enzyme modifié, parce qu'une réaction se déroule et est potentiellement mesurable, même si la réaction est incomplète. Un exemple précoce de
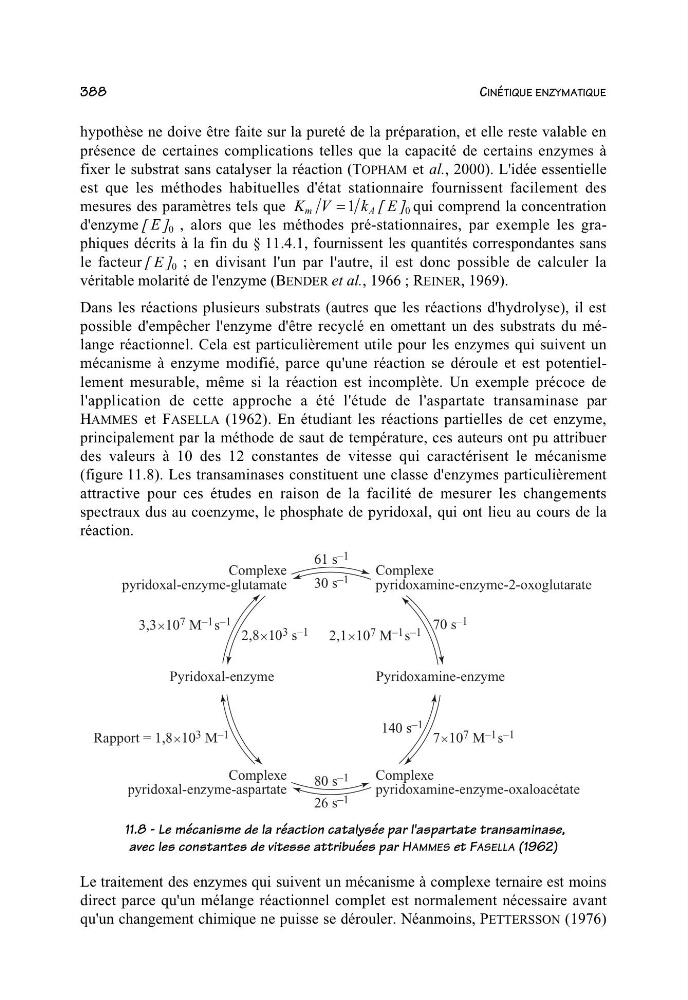
l'application de cette approche a été l'étude de l'aspartate transaminase par
HAMMES et FASELLA (1962). En étudiant les réactions partielles de cet enzyme,
principalement par la méthode de saut de température, ces auteurs ont pu attribuer
des valeurs à 10 des 12 constantes de vitesse qui caractérisent le mécanisme
(figure 11.8). Les transaminases constituent une classe d'enzymes particulièrement
attractive pour ces études en raison de la facilité de mesurer les changements
spectraux dus au coenzyme, le phosphate de pyridoxal, qui ont lieu au cours de la
réaction.
Complexe
pyridoxal-enzyme-glutamate
Complexe
pyridoxamine-enzyme-2-oxoglutarate
Pyridoxamine-enzyme
Pyridoxal-enzyme
Complexe
pyridoxamine-enzyme-oxaloacétate
Complexe
pyridoxal-enzyme-aspartate
61 s –1
30 s –1
80 s –1
70 s –1
3,3×10 7 M –1 s –1
Rapport = 1,8×10 3 M –1
2,1×10 7 M –1 s –1
7×10 7 M –1 s –1
2,8×10 3 s –1
26 s –1
140 s –1
11.8 - Le mécanisme de la réaction catalysée par l'aspartate transaminase,
avec les constantes de vitesse attribuées par HAMMES et FASELLA (1962)
Le traitement des enzymes qui suivent un mécanisme à complexe ternaire est moins
direct parce qu'un mélange réactionnel complet est normalement nécessaire avant
qu'un changement chimique ne puisse se dérouler. Néanmoins, PETTERSSON (1976)