

358
CINÉTIQUE ENZYMATIQUE
individuelles enzyme-métabolite ont des élasticités qui ne sont pas supérieures à 4.
Cette valeur est trop faible pour un mécanisme destiné à opérer comme un interrupteur : cela implique que pour obtenir une variation de 3 fois de la concentration
d'un métabolite il est nécessaire d'avoir une variation de 10% à 90% de l'activité
maximale (voir § 9.1.2).
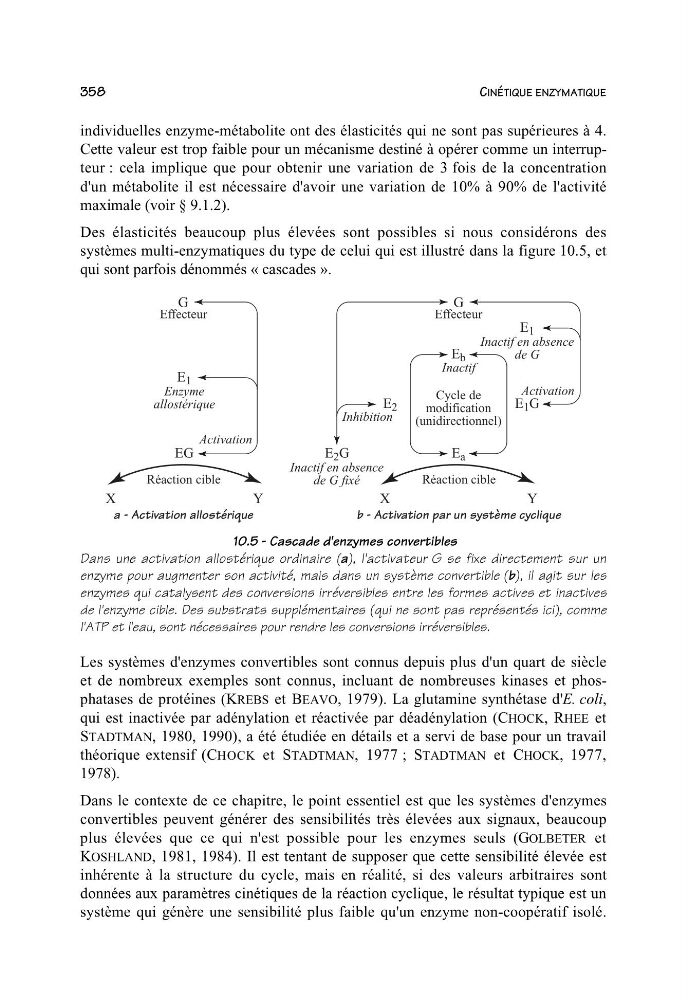
Des élasticités beaucoup plus élevées sont possibles si nous considérons des
systèmes multi-enzymatiques du type de celui qui est illustré dans la figure 10.5, et
qui sont parfois dénommés « cascades ».
b - Activation par un système cyclique
a - Activation allostérique
Effecteur
Enzyme
allostérique
Activation
G
E 1
EG
Réaction cible
X
Y
Effecteur
Inactif en absence
de G
Inactif en absence
de G fixé
Inactif
Cycle de
modification
(unidirectionnel)
Activation
Inhibition
E 2 G
G
E 1
E 2
E 1 G
E b
E a
Réaction cible
XY
10.5 - Cascade d'enzymes convertibles
Dans une activation allostérique ordinaire (a), l'activateur G se fixe directement sur un
enzyme pour augmenter son activité, mais dans un système convertible (b), il agit sur les
enzymes qui catalysent des conversions irréversibles entre les formes actives et inactives
de l'enzyme cible. Des substrats supplémentaires (qui ne sont pas représentés ici), comme
l'ATP et l'eau, sont nécessaires pour rendre les conversions irréversibles.
Les systèmes d'enzymes convertibles sont connus depuis plus d'un quart de siècle
et de nombreux exemples sont connus, incluant de nombreuses kinases et phosphatases de protéines (KREBS et BEAVO, 1979). La glutamine synthétase d'E. coli,
qui est inactivée par adénylation et réactivée par déadénylation (CHOCK, RHEE et
STADTMAN, 1980, 1990), a été étudiée en détails et a servi de base pour un travail
théorique extensif (CHOCK et STADTMAN, 1977 ; STADTMAN et CHOCK, 1977,
1978).
Dans le contexte de ce chapitre, le point essentiel est que les systèmes d'enzymes
convertibles peuvent générer des sensibilités très élevées aux signaux, beaucoup
plus élevées que ce qui n'est possible pour les enzymes seuls (GOLBETER et
KOSHLAND, 1981, 1984). Il est tentant de supposer que cette sensibilité élevée est
inhérente à la structure du cycle, mais en réalité, si des valeurs arbitraires sont
données aux paramètres cinétiques de la réaction cyclique, le résultat typique est un
système qui génère une sensibilité plus faible qu'un enzyme non-coopératif isolé.