

326
CINÉTIQUE ENZYMATIQUE
MENTEN quand la concentration de glucose varie en maintenant constante la
concentration de l’autre substrat, le MgATP
2– (NIEMEYER et al., 1975 ; STORER et
CORNISH-BOWDEN, 1976). Quand elles sont utilisées pour tracer une série de
graphiques de HILL, les données montrent des valeurs de h variant entre 1,5 pour
des concentrations saturantes de MgATP
2– et une valeur faible, probablement égale
à 1,0, pour de faibles concentrations de MgATP
2– . D’un autre côté, l’enzyme ne
présente aucune déviation des cinétiques de MICHAELIS et MENTEN vis-à-vis du
MgATP
2– lui-même. Le comportement de l’hexokinase L I du germe de blé
(MEUNIER et al., 1974) est en général similaire, excepté que la coopérativité est
négative plutôt que positive.
Les exemples de coopérativité avec des enzymes monomériques ne sont pas très
abondants, mais ils existent (voir CORNISH-BOWDEN et CÁRDENAS, 1987), et ils
indiquent que les mécanismes qui génèrent la coopérativité cinétique ne peuvent
plus être ignorés. Nous considérerons deux de ces mécanismes dans ce §. Le plus
ancien a été proposé par FERDINAND (1966), qui soulignait que l’équation de
vitesse à l’état stationnaire pour le mécanisme aléatoire à complexe ternaire
(§ 6.4.2) est plus complexe que l’équation [6.22] si elle est dérivée sans supposer
que les étapes de fixation des substrats sont à l’équilibre ; il a suggéré qu’un
modèle de cette sorte, qu’il a appelé mécanisme à ordre préférentiel, peut fournir
une explication de la coopérativité de la phosphofructokinase. Bien que la
dérivation des équations de vitesse indique clairement que des déviations par
rapport aux cinétiques de MICHAELIS et MENTEN doivent avoir lieu avec ce
mécanisme, cette explication est plutôt abstraite et algébrique, et peut difficilement
être exprimée dans des termes conceptuellement simples. Le point crucial est que
les deux voies pour la fixation du substrat peuvent contribuer de manière
significative au flux total de la réaction, mais les grandeurs relatives de ces
contributions varient avec les variations de la concentration de substrat. Donc le
comportement observé correspond approximativement à une voie pour les concentrations faibles et à une autre voie pour les concentrations élevées.
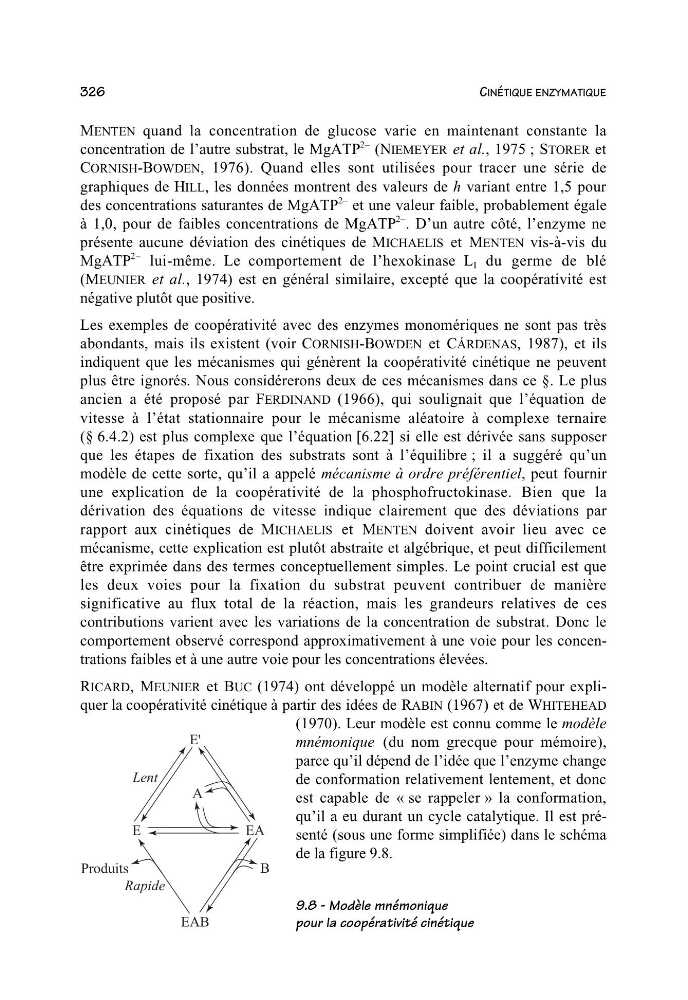
RICARD, MEUNIER et BUC (1974) ont développé un modèle alternatif pour expliquer la coopérativité cinétique à partir des idées de RABIN (1967) et de WHITEHEAD
(1970). Leur modèle est connu comme le modèle
mnémonique (du nom grecque pour mémoire),
parce qu’il dépend de l’idée que l’enzyme change
de conformation relativement lentement, et donc
est capable de « se rappeler » la conformation,
qu’il a eu durant un cycle catalytique. Il est présenté (sous une forme simplifiée) dans le schéma
de la figure 9.8.
9.8 - Modèle mnémonique
pour la coopérativité cinétique
EAB
E
E'
EA
B
A
Lent
Produits
Rapide