

310
CINÉTIQUE ENZYMATIQUE
Le haut degré de spécificité que les enzymes montrent pour leur substrat a impressionné les biochimistes depuis le début de l'étude des enzymes, longtemps avant
que ne soient connues leurs structures physiques et chimiques. FISCHER (1894)
était particulièrement impressionné par la capacité des organismes vivants à distinguer totalement des molécules de sucre qui diffèrent légèrement et à des positions
très éloignées des sites de réaction. Pour expliquer cette capacité, il proposa que le
site actif d’un enzyme soit l’emprunte négative de son (ses) substrat(s), et qu’il
catalyse les réactions uniquement avec les composants qui s’y insèrent précisément. Cela est similaire au mode d’interaction par lequel une clef s’insère dans une
serrure, et cette théorie d’action enzymatique est connue sous le nom de modèle
clef-serrure de FISCHER (§ 3.1.2 et figure 3.2). Pendant de nombreuses années,
cette théorie semblait expliquer tous les faits connus de la spécificité enzymatique,
mais lorsque des recherches plus détaillées furent effectuées, il y eut de plus en
plus d’observations qui étaient difficiles à expliquer avec un site actif rigide, comme
FISCHER l’avait envisagé dans sa théorie. Par exemple, l’existence d’enzymes pour
des réactions impliquant deux substrats, dans lesquelles les substrats doivent se
fixer dans un ordre précis, fournit une preuve de ce problème, comme nous en
avons discuté dans le § 6.2.1. Un exemple plus frappant, remarqué par KOSHLAND,
était l’absence de réactivité de l’eau dans différentes réactions catalysées par des
enzymes, où le modèle clef-serrure prédit une réaction. Considérons, par exemple,
la réaction catalysée par l’hexokinase de levure :
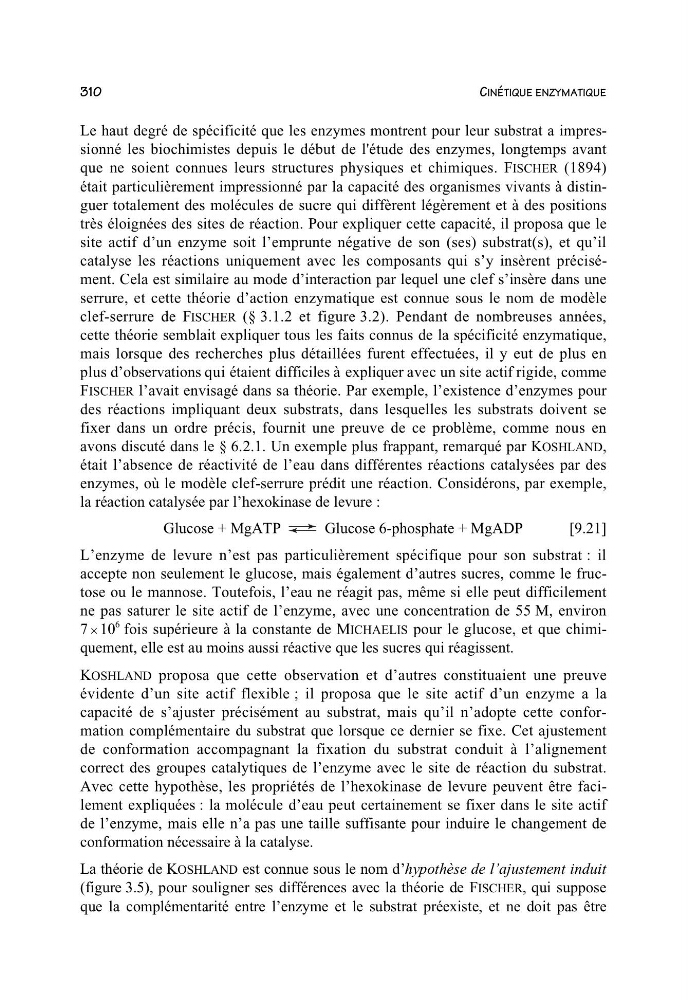
Glucose + MgATP
Glucose 6-phosphate + MgADP
[9.21]
L’enzyme de levure n’est pas particulièrement spécifique pour son substrat : il
accepte non seulement le glucose, mais également d’autres sucres, comme le fructose ou le mannose. Toutefois, l’eau ne réagit pas, même si elle peut difficilement
ne pas saturer le site actif de l’enzyme, avec une concentration de 55 M, environ
7 × 10
6 fois supérieure à la constante de MICHAELIS pour le glucose, et que chimiquement, elle est au moins aussi réactive que les sucres qui réagissent.
KOSHLAND proposa que cette observation et d’autres constituaient une preuve
évidente d’un site actif flexible ; il proposa que le site actif d’un enzyme a la
capacité de s’ajuster précisément au substrat, mais qu’il n’adopte cette conformation complémentaire du substrat que lorsque ce dernier se fixe. Cet ajustement
de conformation accompagnant la fixation du substrat conduit à l’alignement
correct des groupes catalytiques de l’enzyme avec le site de réaction du substrat.
Avec cette hypothèse, les propriétés de l’hexokinase de levure peuvent être facilement expliquées : la molécule d’eau peut certainement se fixer dans le site actif
de l’enzyme, mais elle n’a pas une taille suffisante pour induire le changement de
conformation nécessaire à la catalyse.
La théorie de KOSHLAND est connue sous le nom d’hypothèse de l’ajustement induit
(figure 3.5), pour souligner ses différences avec la théorie de FISCHER, qui suppose
que la complémentarité entre l’enzyme et le substrat préexiste, et ne doit pas être