

190
CINÉTIQUE ENZYMATIQUE
k 1
E + A
EA
k –1
k 2
EA + B
EAB
k –2
EAB
EPQ
[6.4]
k 3
EPQ
EQ + P
k –3
k 4
EQ
E + Q
k –4
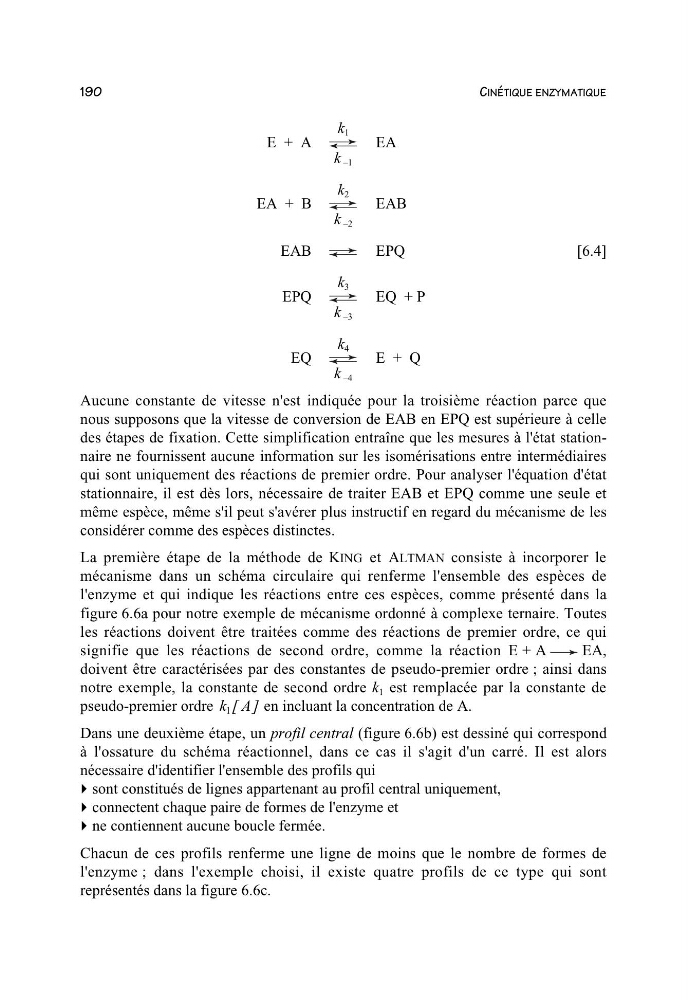
Aucune constante de vitesse n'est indiquée pour la troisième réaction parce que
nous supposons que la vitesse de conversion de EAB en EPQ est supérieure à celle
des étapes de fixation. Cette simplification entraîne que les mesures à l'état stationnaire ne fournissent aucune information sur les isomérisations entre intermédiaires
qui sont uniquement des réactions de premier ordre. Pour analyser l'équation d'état
stationnaire, il est dès lors, nécessaire de traiter EAB et EPQ comme une seule et
même espèce, même s'il peut s'avérer plus instructif en regard du mécanisme de les
considérer comme des espèces distinctes.
La première étape de la méthode de KING et ALTMAN consiste à incorporer le
mécanisme dans un schéma circulaire qui renferme l'ensemble des espèces de
l'enzyme et qui indique les réactions entre ces espèces, comme présenté dans la
figure 6.6a pour notre exemple de mécanisme ordonné à complexe ternaire. Toutes
les réactions doivent être traitées comme des réactions de premier ordre, ce qui
signifie que les réactions de second ordre, comme la réaction E + A
EA,
doivent être caractérisées par des constantes de pseudo-premier ordre ; ainsi dans
notre exemple, la constante de second ordre k 1 est remplacée par la constante de
pseudo-premier ordre kA 1 [] en incluant la concentration de A.
Dans une deuxième étape, un profil central (figure 6.6b) est dessiné qui correspond
à l'ossature du schéma réactionnel, dans ce cas il s'agit d'un carré. Il est alors
nécessaire d'identifier l'ensemble des profils qui
sont constitués de lignes appartenant au profil central uniquement,
connectent chaque paire de formes de l'enzyme et
ne contiennent aucune boucle fermée.
Chacun de ces profils renferme une ligne de moins que le nombre de formes de
l'enzyme ; dans l'exemple choisi, il existe quatre profils de ce type qui sont
représentés dans la figure 6.6c.