

130
14. « Fleur typique » et cas limites : un bilan
traversée du style par le tube pollinique. C’est un intérêt majeur de la structure fermée de l’ovaire. Ainsi, des gènes
d’auto-incompatibilité en particulier le complexe génique S (pour self : reconnaissance du soi et du non-soi)
produisent des protéines qui peuvent inhiber la germination du pollen.
Ainsi, les Angiospermes associent la propriété d’être, dans leur grande majorité, hermaphrodites ce qui fait qu’elles
sont capables de produire des fruits et des graines, tout en assurant un brassage génétique à chaque fécondation :
Dans la grande majorité des animaux, il y a deux sexes séparés et la maternité ne concerne que 50 % des individus.
Lorsqu’un seul sexe est présent, on a vu (p. 82) qu’il existe des espèces dioïques et des espèces monoïques, avec
des variantes par exemple la présence de fleurs hermaphrodites juxtaposées à des fleurs unisexuées (fraisier, frêne).
La diécie (seulement 4 % des Angiospermes, par exemple : l’oseille, la bryone, le houblon, l’ortie, le kiwi…) est un
caractère spécifique : le lychnis fleur-de-coucou est hermaphrodite alors que, voisin et dans la même famille des
Caryophyllacées, le compagnon blanc est à sexes séparés ; la diécie est souvent liée à la présence d’une paire de
chromosomes sexuels. Le compagnon blanc, par exemple, a un caryotype de 24 chromosomes dont 2 ont une
dimension plus grande : ce sont les hétérochromosomes. Ces derniers sont identiques dans l’oosphère alors que
dans le sporophyte mâle (pollen), ils sont différents et l’on distingue des hétérochromosomes X et Y. Le
compagnon blanc et ses chromosomes sexuels ont suscité la curiosité dès le début du XX
e siècle. C’est une espèce
pollinisée par un papillon de nuit qui transporte du pollen avec X ou Y. Il existe des mutants qui ont perdu une
partie (délétion) du chromosome Y. Certains de ces mutants sont hermaphrodites ; il y a donc eu perte d’une
fonction inhibitrice du développement des organes femelles. L’hypothèse la plus probable est que le compagnon
blanc a évolué à partir d’ancêtres hermaphrodites. Le sexe femelle est homogamétique (XX) alors que le sexe mâle
est hétérogamétique (XY) – comme chez les Mammifères, dont l’homme. Dans certains cas il y a féminisation ou
masculinisation par la balance hormonale. Ainsi, les gibbérellines peuvent orienter vers le sexe mâle et les
cytokinines vers le sexe femelle (chanvre, épinard, mercuriale). Des avortements et des émasculations peuvent
aussi se produire à la suite de l’infection (castration parasitaire du lychnis due à un champignon, Ustilago) ou de
traitements expérimentaux. Ainsi, en agronomie, on utilise des variétés « mâle-stérile », obtenues souvent par des
irradiations γ, pour contrôler la pollinisation et les hybridations.
Pollinisation
Elle a fortement modelé le plan d’organisation florale de
base. Le pollen a une durée de vie et une autonomie
limitées : quelques heures à quelques jours ; il doit
rapidement atteindre sa cible, le stigmate. Son transport
implique l’intervention d’un vecteur qui assure ce
déplacement. Ce sont le plus souvent, comme on l’a vu,
le vent ou certains animaux. L’efficacité de la
pollinisation est améliorée par des adaptations typiques
de ces vecteurs.
• Dans le cas du vent (anémophilie), comme chez les
Poacées, les Cypéracées ou la plupart des arbres à
chatons, les étamines forment des systèmes oscillants
qui permettent la dispersion dans l’atmosphère d’un
pollen abondant. Le stigmate présente une large surface
papilleuse de réception. Ce mode de transport reste
malgré tout aléatoire.
• Dans le cas d’une pollinisation par les animaux, il
s’agit d’une adaptation réciproque entre la fleur et le
pollinisateur et la sélection naturelle a favorisé une coAvantages sélectifs cumulés de la majorité des Angiospermes :
– fécondation croisée favorisée et compatibilité contrôlée . . . . . . . . . . . . . . . . . . . . . . . brassage du génome
– intérêt de l’hermaphrodisme . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . tous les individus sont porte-graines
stigmate
style
ovaire
sac embryonnaire
ovule
GYMNOSPERMES
ANGIOSPERMES
carpelle
écaille
du cône
endosperme
ovule
oosphère
gamétophyte femelle
arrivée du pollen
tube pollinique
gamétophyte mâle
pollen
14 3
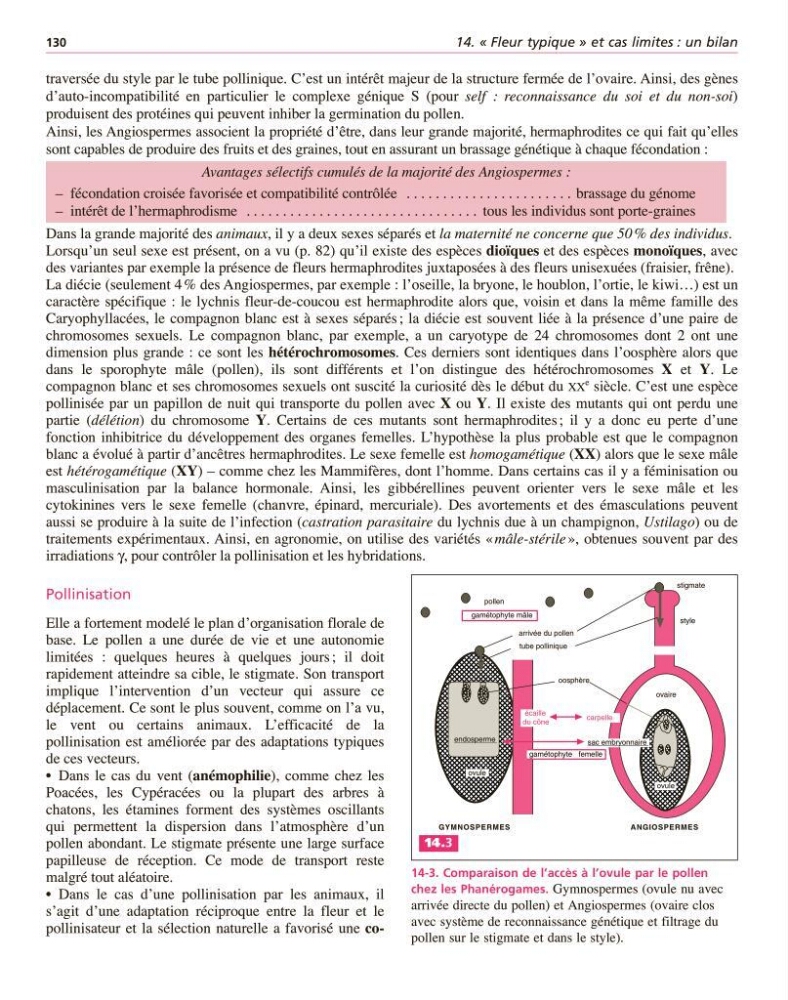
14-3. Comparaison de l’accès à l’ovule par le pollen
chez les Phanérogames. Gymnospermes (ovule nu avec
arrivée directe du pollen) et Angiospermes (ovaire clos
avec système de reconnaissance génétique et filtrage du
pollen sur le stigmate et dans le style).
14.3