

8
Introduction
es groupes d’organismes, algues, champignons, plantes terrestres, présentés dans cet Atlas ont
été étudiés depuis des siècles par de nombreux savants. Ces organismes, ont été classés parmi
les végétaux depuis Aristote, il y a environ 2 500 ans et définis, de façon simplifiée, comme
végétaux immobiles par opposition aux animaux mobiles. Les classifications anciennes sont
fondées sur les ressemblances entre organismes, le choix des caractères et l’évolution des
classifications étant intimement liés aux outils et techniques disponibles à chaque époque pour les observations. Ces vingt dernières années les classifications modernes des organismes eucaryotes ont remis en cause
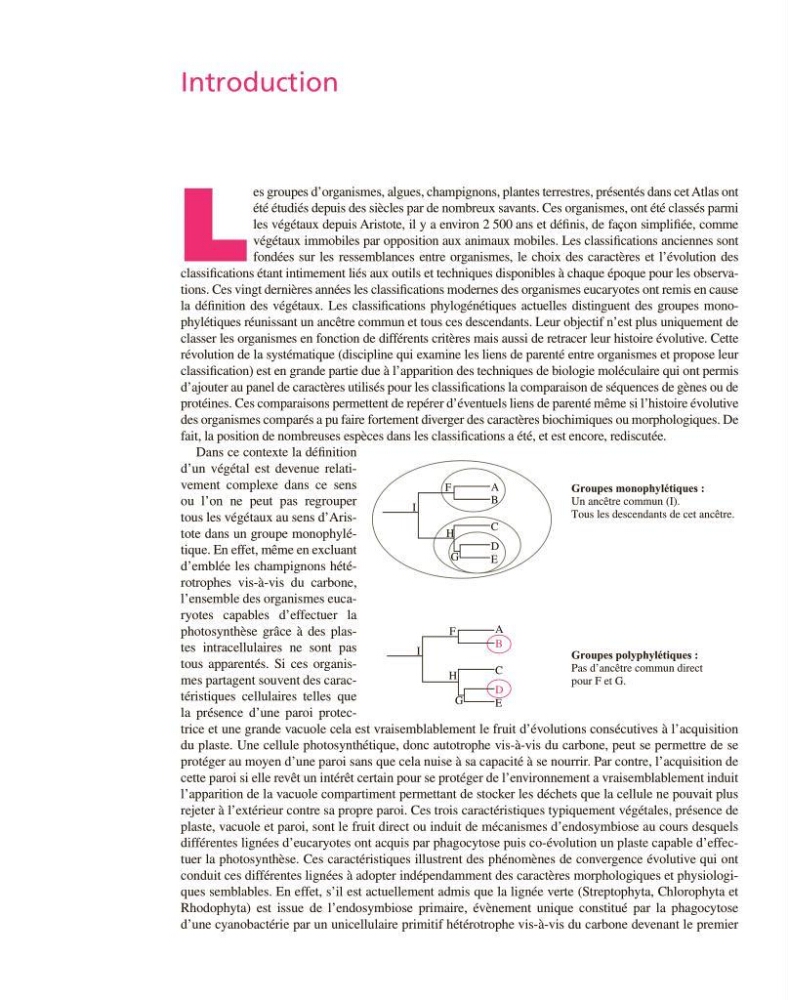
la définition des végétaux. Les classifications phylogénétiques actuelles distinguent des groupes monophylétiques réunissant un ancêtre commun et tous ces descendants. Leur objectif n’est plus uniquement de
classer les organismes en fonction de différents critères mais aussi de retracer leur histoire évolutive. Cette
révolution de la systématique (discipline qui examine les liens de parenté entre organismes et propose leur
classification) est en grande partie due à l’apparition des techniques de biologie moléculaire qui ont permis
d’ajouter au panel de caractères utilisés pour les classifications la comparaison de séquences de gènes ou de
protéines. Ces comparaisons permettent de repérer d’éventuels liens de parenté même si l’histoire évolutive
des organismes comparés a pu faire fortement diverger des caractères biochimiques ou morphologiques. De
fait, la position de nombreuses espèces dans les classifications a été, et est encore, rediscutée.
Dans ce contexte la définition
d’un végétal est devenue relativement complexe dans ce sens
ou l’on ne peut pas regrouper
tous les végétaux au sens d’Aristote dans un groupe monophylétique. En effet, même en excluant
d’emblée les champignons hétérotrophes vis-à-vis du carbone,
l’ensemble des organismes eucaryotes capables d’effectuer la
photosynthèse grâce à des plastes intracellulaires ne sont pas
tous apparentés. Si ces organismes partagent souvent des caractéristiques cellulaires telles que
la présence d’une paroi protectrice et une grande vacuole cela est vraisemblablement le fruit d’évolutions consécutives à l’acquisition
du plaste. Une cellule photosynthétique, donc autotrophe vis-à-vis du carbone, peut se permettre de se
protéger au moyen d’une paroi sans que cela nuise à sa capacité à se nourrir. Par contre, l’acquisition de
cette paroi si elle revêt un intérêt certain pour se protéger de l’environnement a vraisemblablement induit
l’apparition de la vacuole compartiment permettant de stocker les déchets que la cellule ne pouvait plus
rejeter à l’extérieur contre sa propre paroi. Ces trois caractéristiques typiquement végétales, présence de
plaste, vacuole et paroi, sont le fruit direct ou induit de mécanismes d’endosymbiose au cours desquels
différentes lignées d’eucaryotes ont acquis par phagocytose puis co-évolution un plaste capable d’effectuer la photosynthèse. Ces caractéristiques illustrent des phénomènes de convergence évolutive qui ont
conduit ces différentes lignées à adopter indépendamment des caractères morphologiques et physiologiques semblables. En effet, s’il est actuellement admis que la lignée verte (Streptophyta, Chlorophyta et
Rhodophyta) est issue de l’endosymbiose primaire, évènement unique constitué par la phagocytose
d’une cyanobactérie par un unicellulaire primitif hétérotrophe vis-à-vis du carbone devenant le premier
L
A
B
C
D
E
H
F
G
I
Groupes monophylétiques :
Un ancêtre commun (I).
Tous les descendants de cet ancêtre.
A
B
C
D
E
H
F
G
I
Groupes polyphylétiques :
Pas d’ancêtre commun direct
pour F et G.