

4. F LUX DE L ’ INFORMATION GÉNÉTIQUE.S TRUCTURE ET EXPRESSION DES G È NES.
85
© Dunod – La photocopie non autorisée est un délit.
26 à 29 kDa et un coefficient de sédimentation de
4Senviron), d’où leur ancienne dénomination :
ARN solubles. En raison de leur faible masse
moléculaire, le nombre absolu de ces molécules
par cellule est considérable. Du fait de leurs propriétés physiologiques et structurales très voisines,
il a été longtemps très difficile de purifier des
espèces distinctes d’ARNt en quantités importantes. La séquence nucléotidique complète et
l’organisation en structure secondaire du premier
ARNt caractérisé furent établies en 1964 ; cette
molécule, qui liait spécifiquement l’alanine, fut
donc nommée ARNt
ala
. On a montré qu’il existe
plusieurs dizaines d’espèces différentes d’ARNt
(environ 40) chez les Eucaryotes ou les Procaryotes.
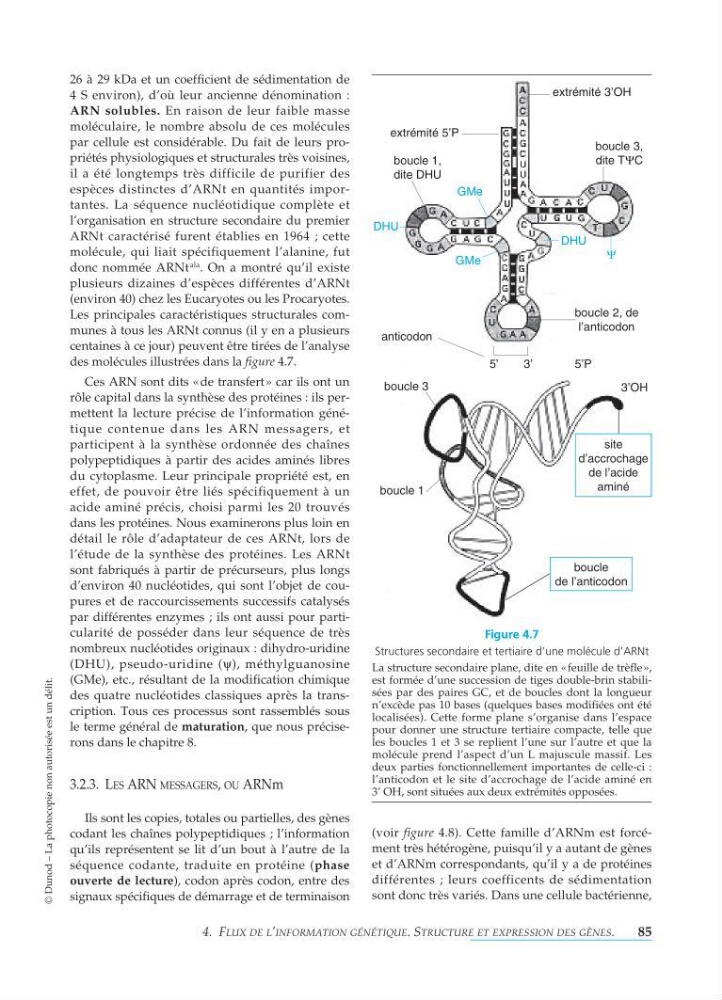
Les principales caractéristiques structurales communes à tous les ARNt connus (il y en a plusieurs
centaines à ce jour) peuvent être tirées de l’analyse
des molécules illustrées dans la figure 4.7.
Ces ARN sont dits «de transfert» car ils ont un
rôle capital dans la synthèse des protéines : ils permettent la lecture précise de l’information génétique contenue dans les ARN messagers, et
participent à la synthèse ordonnée des chaînes
polypeptidiques à partir des acides aminés libres
du cytoplasme. Leur principale propriété est, en
effet, de pouvoir être liés spécifiquement à un
acide aminé précis, choisi parmi les 20 trouvés
dans les protéines. Nous examinerons plus loin en
détail le rôle d’adaptateur de ces ARNt, lors de
l’étude de la synthèse des protéines. Les ARNt
sont fabriqués à partir de précurseurs, plus longs
d’environ 40 nucléotides, qui sont l’objet de coupures et de raccourcissements successifs catalysés
par différentes enzymes ; ils ont aussi pour particularité de posséder dans leur séquence de très
nombreux nucléotides originaux : dihydro-uridine
(DHU), pseudo-uridine ( ψ ), méthylguanosine
(GMe), etc., résultant de la modification chimique
des quatre nucléotides classiques après la transcription. Tous ces processus sont rassemblés sous
le terme général de maturation, que nous préciserons dans le chapitre 8.
3.2.3. L ES ARN MESSAGERS, OU ARNm
Ils sont les copies, totales ou partielles, des gènes
codant les chaînes polypeptidiques ; l’information
qu’ils représentent se lit d’un bout à l’autre de la
séquence codante, traduite en protéine ( phase
ouverte de lecture), codon après codon, entre des
signaux spécifiques de démarrage et de terminaison
(voir figure 4.8). Cette famille d’ARNm est forcément très hétérogène, puisqu’il y a autant de gènes
et d’ARNm correspondants, qu’il y a de protéines
différentes ; leurs coefficents de sédimentation
sont donc très variés. Dans une cellule bactérienne,
extrémité 5’P
GMe
GMe
DHU
DHU
Ψ
anticodon
5’
5’P
3’OH
3’
boucle 1,
dite DHU
boucle 3,
dite T Ψ C
boucle 2, de
l’anticodon
boucle 3
site
d’accrochage
de l’acide
aminé
boucle
de l’anticodon
boucle 1
extrémité 3’OH
Figure 4.7
Structures secondaire et tertiaire d’une molécule d’ARNt
La structure secondaire plane, dite en «feuille de trèfle»,
est formée d’une succession de tiges double-brin stabilisées par des paires GC, et de boucles dont la longueur
n’excède pas 10 bases (quelques bases modifiées ont été
localisées). Cette forme plane s’organise dans l’espace
pour donner une structure tertiaire compacte, telle que
les boucles 1 et 3 se replient l’une sur l’autre et que la
molécule prend l’aspect d’un L majuscule massif. Les
deux parties fonctionnellement importantes de celle-ci :
l’anticodon et le site d’accrochage de l’acide aminé en
3’ OH, sont situées aux deux extrémités opposées.