

84
B IOLOGIE CELLULAIRE
les tailles sont de 47 00, 19 00, 160 et 120 nucléotides (28 S, 18 S, 5,8 S et 5S ). Nous verrons plus
loin que leurs organites semi-autonomes (mitochondries et plastes) possèdent des ribosomes spécifiques, et donc des ARNr propres.
Dans les génomes bactériens, les trois catégories
d’ARNr sont codées par des gènes présents en
plusieurs copies (sept chez E. coli);ces gènes sont
regroupés en ensembles contenant chacun un
exemplaire de chaque espèce moléculaire (et associant aussi des ARN de transfert, dont nous parlerons plus loin). Ces ensembles constituent des
unités de transcription, dans la mesure où un seul
ARN géant est fabriqué, à partir duquel les différents ARN individuels seront obtenus par découpages successifs. La stœchiométrie des ARN dans
les particules ribosomiques (1, 1, 1) est donc imposée dès le départ par l’organisation même de leurs
gènes et leur mode de transcription.
Les gènes codant les ARNr chez les Eucaryotes
seront étudiés dans le chapitre 8;nous verrons
qu’ils ont aussi une structure complexe, et qu’il
existe un nombre élevé de copies par génome.
L’existence très générale de copies multiples pour
ces gènes, contrairement à ce qui sera observé
pour les ARN messagers (en raison de l’amplification de l’information qui se déroule lors de la traduction ; voir plus loin), est à rapprocher du fait
que les ARNr sont des molécules de structure
entrant dans la constitution des ribosomes, qui
existent en abondance dans toutes les cellules. Les
ARNr représentent près de 80 % de la masse des
ARN totaux ; ils sont caractérisés par une grande
stabilité métabolique et une durée de vie importante à l’échelle de la vie des cellules. Ceci tient au
fait qu’ils appartiennent à des structures contenant
des protéines, ce qui conduit à les stabiliser considérablement.
Les ARNr présentent deux particularités remarquables.
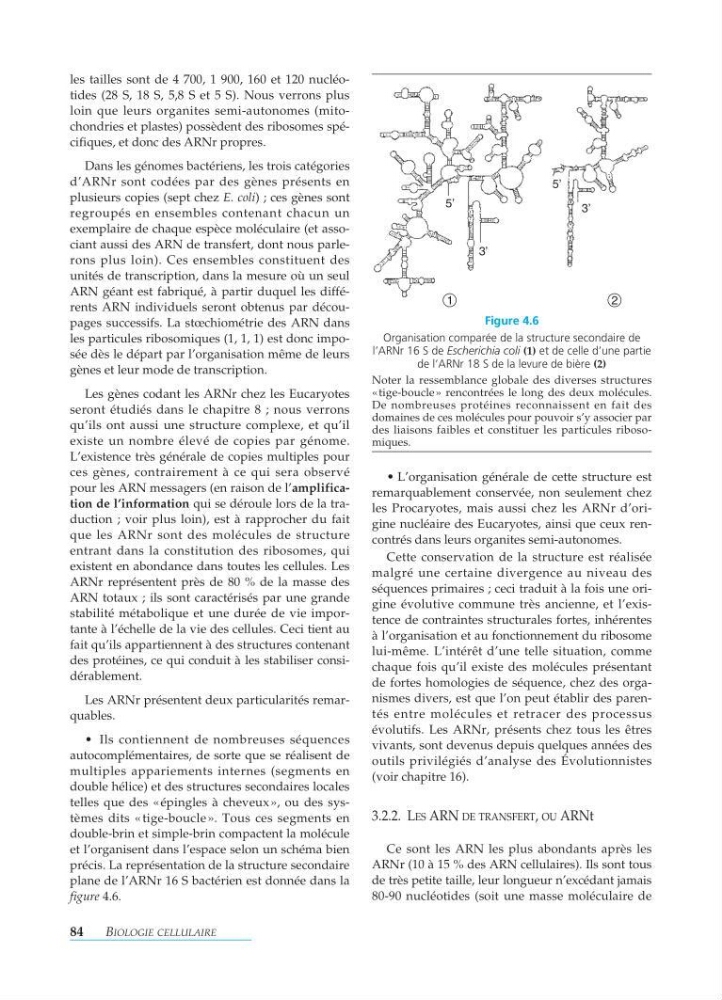
•I ls contiennent de nombreuses séquences
autocomplémentaires, de sorte que se réalisent de
multiples appariements internes (segments en
double hélice) et des structures secondaires locales
telles que des «épingles à cheveux », ou des systèmes dits «tige-boucle». Tous ces segments en
double-brin et simple-brin compactent la molécule
et l’organisent dans l’espace selon un schéma bien
précis. La représentation de la structure secondaire
plane de l’ARNr 16 S bactérien est donnée dans la
figure 4.6.
•L’organisation générale de cette structure est
remarquablement conservée, non seulement chez
les Procaryotes, mais aussi chez les ARNr d’origine nucléaire des Eucaryotes, ainsi que ceux rencontrés dans leurs organites semi-autonomes.
Cette conservation de la structure est réalisée
malgré une certaine divergence au niveau des
séquences primaires ; ceci traduit à la fois une origine évolutive commune très ancienne, et l’existence de contraintes structurales fortes, inhérentes
à l’organisation et au fonctionnement du ribosome
lui-même. L’intérêt d’une telle situation, comme
chaque fois qu’il existe des molécules présentant
de fortes homologies de séquence, chez des organismes divers, est que l’on peut établir des parentés entre molécules et retracer des processus
évolutifs. Les ARNr, présents chez tous les êtres
vivants, sont devenus depuis quelques années des
outils privilégiés d’analyse des Évolutionnistes
(voir chapitre 16).
3.2.2. L ES ARN DE TRANSFERT, OU ARNt
Ce sont les ARN les plus abondants après les
ARNr (10 à 15 % des ARN cellulaires). Ils sont tous
de très petite taille, leur longueur n’excédant jamais
80-90 nucléotides (soit une masse moléculaire de
5’
5’
3’
3’
Figure 4.6
Organisation comparée de la structure secondaire de
l’ARNr 16 S de Escherichia coli (1) et de celle d’une partie
de l’ARNr 18 S de la levure de bière (2)
Noter la ressemblance globale des diverses structures
«tige-boucle» rencontrées le long des deux molécules.
De nombreuses protéines reconnaissent en fait des
domaines de ces molécules pour pouvoir s’y associer par
des liaisons faibles et constituer les particules ribosomiques.
1
2