

15. A UX CONFINS DU MONDE VIVANT : VIROÏ DES, PLASMIDES ET VIRUS.L AQ UESTION DES PRIONS 457
© Dunod – La photocopie non autorisée est un délit.
• Le Virus de la forêt de Semliki
Il a été isolé de cellules de moustiques de la
forêt de Semliki (Ouganda) ; c’est un Virus à ARN
dont le plan d’organisation rappelle celui du Virus
de la grippe, mais en plus simple. Le virion, qui a
un diamètre d’environ 65 nm, possède une enveloppe lipoprotéique dans laquelle on identifie une
seule protéine hétérotrimérique formant des spicules pointant vers l’extérieur. La nucléocapside
est de type icosaédrique modifié, car c’est un polyèdre régulier à 60 faces (toutes des triangles équilatéraux) ; elle est constituée de 180 molécules d’une
même protéine globulaire, qui sont étroitement
appliquées à la face interne de la membrane, tandis que la molécule d’ARN (12 700 nucléotides)
emplit la cavité du virion. Chaque spicule est associé à une molécule de la nucléocapside, à travers la
bicouche lipidique. L’intérêt de ce Virus est que
l’on connaît parfaitement les différentes étapes de
son cycle, depuis son entrée dans la cellule jusqu’à
sa sortie (voir plus loin).
• Le Virus VIH (Virus de l’immunodéficience
humaine)
Il est responsable d’une maladie, tristement
connue, le SIDA (syndrome d’immunodéficience
acquise), décrit pour la première fois en 1981, et
dû à la destruction, par ce Virus, de certains lymphocytes. Il appartient à la catégorie des Rétrovirus
qui sont caractérisés par une biologie complexe
que nous décrirons plus loin. L’organisation du
virion (dont la taille est voisine de 100 nm) est
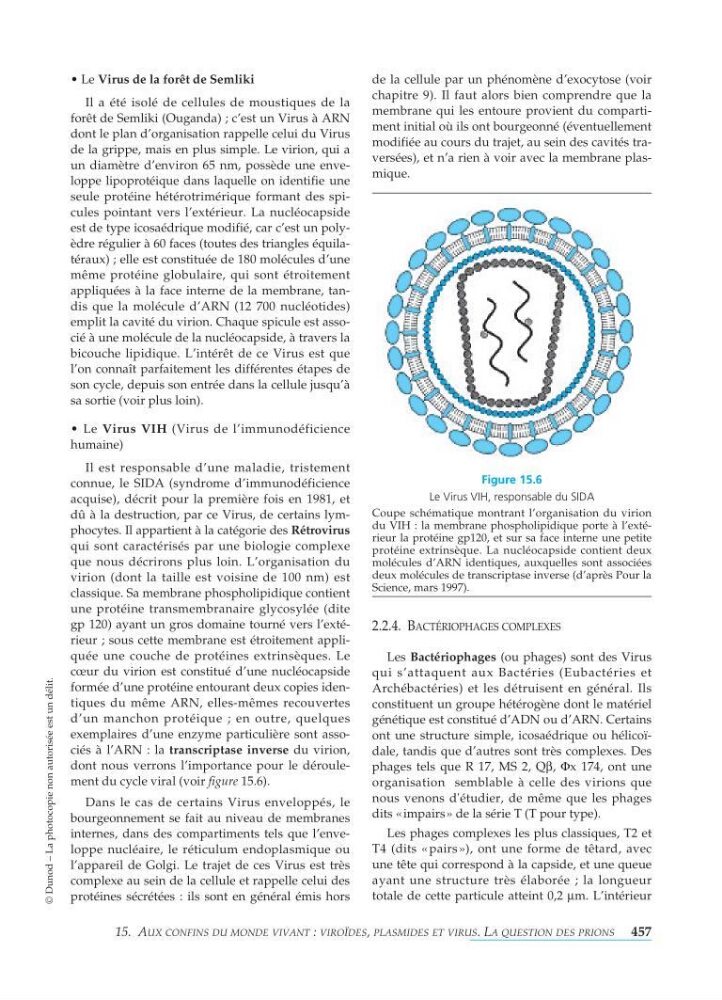
classique. Sa membrane phospholipidique contient
une protéine transmembranaire glycosylée (dite
gp 120) ayant un gros domaine tourné vers l’extérieur ; sous cette membrane est étroitement appliquée une couche de protéines extrinsèques. Le
cœur du virion est constitué d’une nucléocapside
formée d’une protéine entourant deux copies identiques du même ARN, elles-mêmes recouvertes
d’un manchon protéique ; en outre, quelques
exemplaires d’une enzyme particulière sont associés à l’ARN : la transcriptase inverse du virion,
dont nous verrons l’importance pour le déroulement du cycle viral (voir figure 15.6).
Dans le cas de certains Virus enveloppés, le
bourgeonnement se fait au niveau de membranes
internes, dans des compartiments tels que l’enveloppe nucléaire, le réticulum endoplasmique ou
l’appareil de Golgi. Le trajet de ces Virus est très
complexe au sein de la cellule et rappelle celui des
protéines sécrétées : ils sont en général émis hors
de la cellule par un phénomène d’exocytose (voir
chapitre 9). Il faut alors bien comprendre que la
membrane qui les entoure provient du compartiment initial où ils ont bourgeonné (éventuellement
modifiée au cours du trajet, au sein des cavités traversées), et n’a rien à voir avec la membrane plasmique.
2.2.4. B ACTÉRIOPHAGES COMPLEXES
Les Bactériophages (ou phages) sont des Virus
qui s’attaquent aux Bactéries (Eubactéries et
Archébactéries) et les détruisent en général. Ils
constituent un groupe hétérogène dont le matériel
génétique est constitué d’ADN ou d’ARN. Certains
ont une structure simple, icosaédrique ou hélicoïdale, tandis que d’autres sont très complexes. Des
phages tels que R1 7, MS 2, Q β , Φ x1 74, ont une
organisation semblable à celle des virions que
nous venons d'étudier, de même que les phages
dits «impairs» de la série T (T pour type).
Les phages complexes les plus classiques, T2 et
T4 (dits «pairs »), ont une forme de têtard, avec
une tête qui correspond à la capside, et une queue
ayant une structure très élaborée ; la longueur
totale de cette particule atteint 0,2 µ m. L’intérieur
Figure 15.6
Le Virus VIH, responsable du SIDA
Coupe schématique montrant l’organisation du virion
du VIH : la membrane phospholipidique porte à l’extérieur la protéine gp120, et sur sa face interne une petite
protéine extrinsèque. La nucléocapside contient deux
molécules d’ARN identiques, auxquelles sont associées
deux molécules de transcriptase inverse (d’après Pour la
Science, mars 1997).