

452 B IOLOGIE CELLULAIRE
reproduire et d’évoluer, mais l’absence de structure cellulaire, de métabolisme et de croissance fait
qu’on ne peut les considérer comme des êtres
vivants ; ils représentent un état dit acaryote.
Bien que les maladies virales soient connues
depuis l’Antiquité, les agents qui en sont responsables n’ont été clairement identifiés qu’au milieu
de notre siècle. Leur découverte, en tant qu’entités
infectieuses différentes des Bactéries, date de la fin
du XIX
e
siècle, avec les travaux initiés par I VANOWSKI
(1892) et B EIJERINCK (1898) sur le Virus de la
mosaïque du tabac (VMT), et ceux de T WORT et
d’HÉRELLE (1917) sur les Bactériophages. La cristallisation du VMT fut réalisée en 1935 par S TANLEY,
étape qui ouvrit la voie aux analyses biochimiques
précises, grâce à l’utilisation des ultracentrifugeuses développées à la fin des années 30. Enfin, le
développement de la microscopie électronique, à
partir de 1945, et celui de la multiplication in vitro
des Virus sur des cellules en culture permit
l’explosion des travaux portant sur la morphologie, l’organisation et la physiologie des virions. La
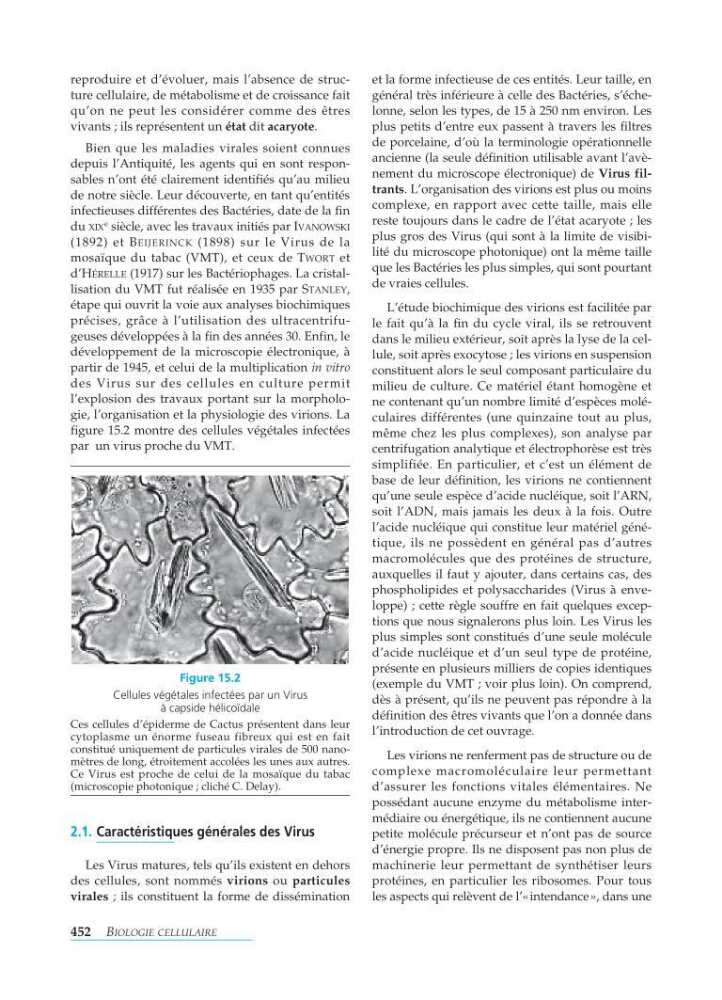
figure 15.2 montre des cellules végétales infectées
par un virus proche du VMT.
2.1. Caractéristiques générales des Virus
Les Virus matures, tels qu’ils existent en dehors
des cellules, sont nommés virions ou particules
virales ; ils constituent la forme de dissémination
et la forme infectieuse de ces entités. Leur taille, en
général très inférieure à celle des Bactéries, s’échelonne, selon les types, de 15 à250 nm environ. Les
plus petits d’entre eux passent à travers les filtres
de porcelaine, d’où la terminologie opérationnelle
ancienne (la seule définition utilisable avant l’avènement du microscope électronique) de Virus filtrants. L’organisation des virions est plus ou moins
complexe, en rapport avec cette taille, mais elle
reste toujours dans le cadre de l’état acaryote ; les
plus gros des Virus (qui sont à la limite de visibilité du microscope photonique) ont la même taille
que les Bactéries les plus simples, qui sont pourtant
de vraies cellules.
L’étude biochimique des virions est facilitée par
le fait qu’à la fin du cycle viral, ils se retrouvent
dans le milieu extérieur, soit après la lyse de la cellule, soit après exocytose ; les virions en suspension
constituent alors le seul composant particulaire du
milieu de culture. Ce matériel étant homogène et
ne contenant qu’un nombre limité d’espèces moléculaires différentes (une quinzaine tout au plus,
même chez les plus complexes), son analyse par
centrifugation analytique et électrophorèse est très
simplifiée. En particulier, et c’est un élément de
base de leur définition, les virions ne contiennent
qu’une seule espèce d’acide nucléique, soit l’ARN,
soit l’ADN, mais jamais les deux à la fois. Outre
l’acide nucléique qui constitue leur matériel génétique, ils ne possèdent en général pas d’autres
macromolécules que des protéines de structure,
auxquelles il faut y ajouter, dans certains cas, des
phospholipides et polysaccharides (Virus à enveloppe) ; cette règle souffre en fait quelques exceptions que nous signalerons plus loin. Les Virus les
plus simples sont constitués d’une seule molécule
d’acide nucléique et d’un seul type de protéine,
présente en plusieurs milliers de copies identiques
(exemple du VMT ; voir plus loin). On comprend,
dès à présent, qu’ils ne peuvent pas répondre à la
définition des êtres vivants que l’on a donnée dans
l’introduction de cet ouvrage.
Les virions ne renferment pas de structure ou de
complexe macromoléculaire leur permettant
d’assurer les fonctions vitales élémentaires. Ne
possédant aucune enzyme du métabolisme intermédiaire ou énergétique, ils ne contiennent aucune
petite molécule précurseur et n’ont pas de source
d’énergie propre. Ils ne disposent pas non plus de
machinerie leur permettant de synthétiser leurs
protéines, en particulier les ribosomes. Pour tous
les aspects qui relèvent de l’«intendance», dans une
Figure 15.2
Cellules végétales infectées par un Virus
à capside hélicoïdale
Ces cellules d’épiderme de Cactus présentent dans leur
cytoplasme un énorme fuseau fibreux qui est en fait
constitué uniquement de particules virales de 500 nanomètres de long, étroitement accolées les unes aux autres.
Ce Virus est proche de celui de la mosaïque du tabac
(microscopie photonique ; cliché C. Delay).