

et résistantes, mais aussi plastiques et extensibles,
dans la mesure où le réseau de cellulose peut être
rompu localement et où les fibres peuvent glisser
les unes par rapport aux autres ; elles permettent,
sous l’action de facteurs variés, l’élongation de cellules vivantes dans les organes en croissance.
• La paroi secondaire, le plus souvent épaisse et
pouvant présenter des formes complexes, se rencontre chez les cellules matures, ayant terminé leur
croissance. Inextensible, elle est d’une composition
très variable et en rapport avec des types cellulaires
bien différenciés. On rappelle qu’elle peut servir
parfois de réserve de sucres chez certaines graines
(voir chapitre 7). Elle est en général élaborée par
addition de matériel cellulosique à l’intérieur de
l’espace limité par la paroi primaire. Comme précédemment, diverses couches dans lesquelles
l’orientation des fibres est différente peuvent être
distinguées ; en revanche, la structure fibreuse de
cette paroi est plus «serrée» de sorte que celle-ci
est beaucoup moins plastique ; de plus, elle se
modifie chimiquement à brève échéance et se sclérifie. Le processus consiste en une imprégnation
dans toute son épaisseur (mais surtout au niveau
de la lamelle moyenne et de la paroi primaire) par
de la lignine qui confère de façon irréversible une
stabilité chimique et une inextensibilité totales à la
paroi. La lignine est un polymère de haut poids
moléculaire (un polyphénol) formant en effet un
réseau tridimensionnel qui interpénètre la matrice
glucidique et glycoprotéique préexistante (incrustation). Divers types de cellules subissent ce processus : les sclérocytes (cellules du sclérenchyme )
qui sont des cellules de soutien, et les vaisseaux du
xylème, qui présentent des parois secondaires souvent discontinues (anneaux, spirales). Dans tous
les cas, ces cellules meurent rapidement ; leur
cytoplasme et leur noyau dégénèrent en raison du
caractère hydrophobe de la nouvelle paroi.
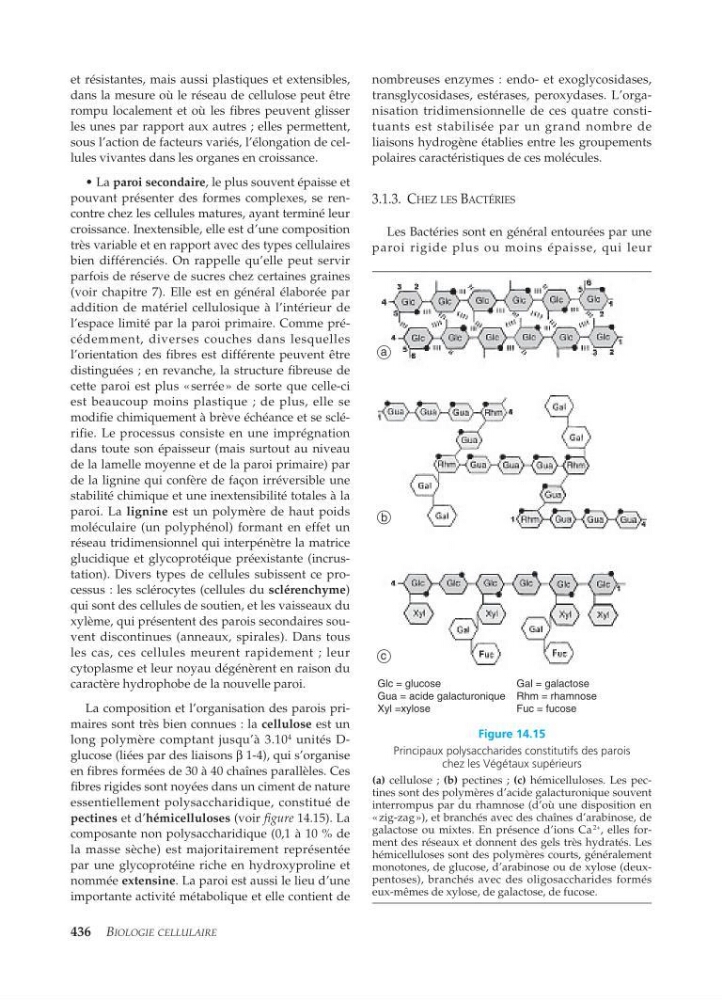
La composition et l’organisation des parois primaires sont très bien connues : la cellulose est un
long polymère comptant jusqu’à 3.10
4
unités Dglucose (liées par des liaisons β 1-4), qui s’organise
en fibres formées de 30 à 40 chaînes parallèles. Ces
fibres rigides sont noyées dans un ciment de nature
essentiellement polysaccharidique, constitué de
pectines et d’hémicelluloses (voir figure 14.15). La
composante non polysaccharidique (0,1 à 10 % de
la masse sèche) est majoritairement représentée
par une glycoprotéine riche en hydroxyproline et
nommée extensine . La paroi est aussi le lieu d’une
importante activité métabolique et elle contient de
nombreuses enzymes : endo- et exoglycosidases,
transglycosidases, estérases, peroxydases. L’organisation tridimensionnelle de ces quatre constituants est stabilisée par un grand nombre de
liaisons hydrogène établies entre les groupements
polaires caractéristiques de ces molécules.
3.1.3. C HEZ LES B ACTÉRIES
Les Bactéries sont en général entourées par une
paroi rigide plus ou moins épaisse, qui leur
436 B IOLOGIE CELLULAIRE
Figure 14.15
Principaux polysaccharides constitutifs des parois
chez les Végétaux supérieurs
(a) cellulose ; (b) pectines ; (c) hémicelluloses. Les pectines sont des polymères d’acide galacturonique souvent
interrompus par du rhamnose (d’où une disposition en
«zig-zag»), et branchés avec des chaînes d’arabinose, de
galactose ou mixtes. En présence d’ions Ca
2+
, elles forment des réseaux et donnent des gels très hydratés. Les
hémicelluloses sont des polymères courts, généralement
monotones, de glucose, d’arabinose ou de xylose (deuxpentoses), branchés avec des oligosaccharides formés
eux-mêmes de xylose, de galactose, de fucose.
Glc = glucose
Gua = acide galacturonique
Xyl =xylose
Gal = galactose
Rhm = rhamnose
Fuc = fucose
a
c
b