

13. C ONTRÔLE DU CYCLE CELLULAIRE CHEZ LES EUCARYOTES. U NE XEMPLE DE SIGNALISATION CELLULAIRE 403
© Dunod – La photocopie non autorisée est un délit.
L’importance des levures est enfin liée au fait
qu’elles ont permis une approche moléculaire
rapide du problème. La possibilité de les transformer par des plasmides recombinés a autorisé le
clonage des gènes sauvages restaurant les fonctions
perdues chez les mutants (complémentation fonctionnelle), et donc l’identification des protéines
codées. L’universalité du système de contrôle mis
en évidence, et la puissance de l’outil utilisé, se
sont manifestées lorsqu’on a observé que des gènes
clonés d’Animaux pouvaient compenser, après
transformation, des déficiences chez la levure.
1.2.3. M ODÈLE BIOCHIMIQUE DU CONTRÔLE
DU CYCLE CELLULAIRE
Le fonctionnement cyclique des cellules en prolifération est nécessairement basé sur l’existence
de protéines qui ont elles-mêmes une activité
cyclique, comme l’exemple du MPF l’a montré plus
haut. Le principe est donc celui d’un «oscillateur
biologique » , dont le fonctionnement est universel.
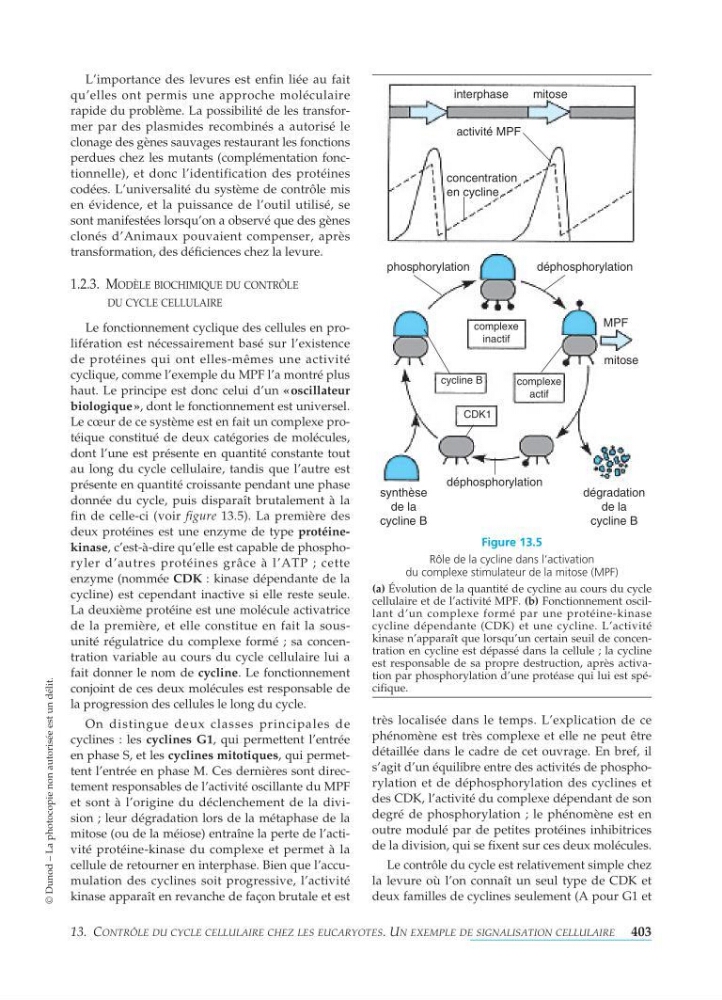
Le cœur de ce système est en fait un complexe protéique constitué de deux catégories de molécules,
dont l’une est présente en quantité constante tout
au long du cycle cellulaire, tandis que l’autre est
présente en quantité croissante pendant une phase
donnée du cycle, puis disparaît brutalement à la
fin de celle-ci (voir figure 13.5). La première des
deux protéines est une enzyme de type protéinekinase, c’est-à-dire qu’elle est capable de phosphoryler d’autres protéines grâce à l’ATP ; cette
enzyme (nommée CDK :k inase dépendante de la
cycline) est cependant inactive si elle reste seule.
La deuxième protéine est une molécule activatrice
de la première, et elle constitue en fait la sousunité régulatrice du complexe formé ; sa concentration variable au cours du cycle cellulaire lui a
fait donner le nom de cycline. Le fonctionnement
conjoint de ces deux molécules est responsable de
la progression des cellules le long du cycle.
On distingue deux classes principales de
cyclines : les cyclines G1, qui permettent l’entrée
en phase S, et les cyclines mitotiques, qui permettent l’entrée en phase M. Ces dernières sont directement responsables de l’activité oscillante du MPF
et sont à l’origine du déclenchement de la division ; leur dégradation lors de la métaphase de la
mitose (ou de la méiose) entraîne la perte de l’activité protéine-kinase du complexe et permet à la
cellule de retourner en interphase. Bien que l’accumulation des cyclines soit progressive, l’activité
kinase apparaît en revanche de façon brutale et est
très localisée dans le temps. L’explication de ce
phénomène est très complexe et elle ne peut être
détaillée dans le cadre de cet ouvrage. En bref, il
s’agit d’un équilibre entre des activités de phosphorylation et de déphosphorylation des cyclines et
des CDK, l’activité du complexe dépendant de son
degré de phosphorylation ; le phénomène est en
outre modulé par de petites protéines inhibitrices
de la division, qui se fixent sur ces deux molécules.
Le contrôle du cycle est relativement simple chez
la levure où l’on connaît un seul type de CDK et
deux familles de cyclines seulement (A pour G1 et
Figure 13.5
Rôle de la cycline dans l’activation
du complexe stimulateur de la mitose (MPF)
(a) Évolution de la quantité de cycline au cours du cycle
cellulaire et de l’activité MPF. (b) Fonctionnement oscillant d’un complexe formé par une protéine-kinase
cycline dépendante (CDK) et une cycline. L’activité
kinase n’apparaît que lorsqu’un certain seuil de concentration en cycline est dépassé dans la cellule ; la cycline
est responsable de sa propre destruction, après activation par phosphorylation d’une protéase qui lui est spécifique.
interphase
mitose
activité MPF
phosphorylation
synthèse
de la
cycline B
dégradation
de la
cycline B
complexe
inactif
complexe
actif
cycline B
CDK1
déphosphorylation
MPF
mitose
déphosphorylation
concentration
en cycline