

Les éléments de base de la caractérisation des
chromosomes ont longtemps été seulement la
taille et la position du centromère. L’indice centromérique, défini plus haut, permet de différencier
des catégories morphologiques simples telles que :
chromosomes métacentriques, acrocentriques ou
télocentriques, selon que le centromère est
médian, subterminal ou terminal. Depuis les
années 70, plusieurs techniques cytologiques (dites
de banding) ont été développées, qui permettent
de compléter cette description en mettant en évidence un profil reproductible de bandes transversales colorées, le long des chromosomes. Il est
ainsi possible d’identifier chacun d’eux sans ambiguïté, même lorsque la taille ou l’indice centromérique sont peu discriminants. La première
technique (qui utilise la coloration de Giemsa, classique en cytologie) met préalablement en œuvre
une protéolyse partielle des chromosomes ; elle
fait apparaître des bandes sombres, dites bandes
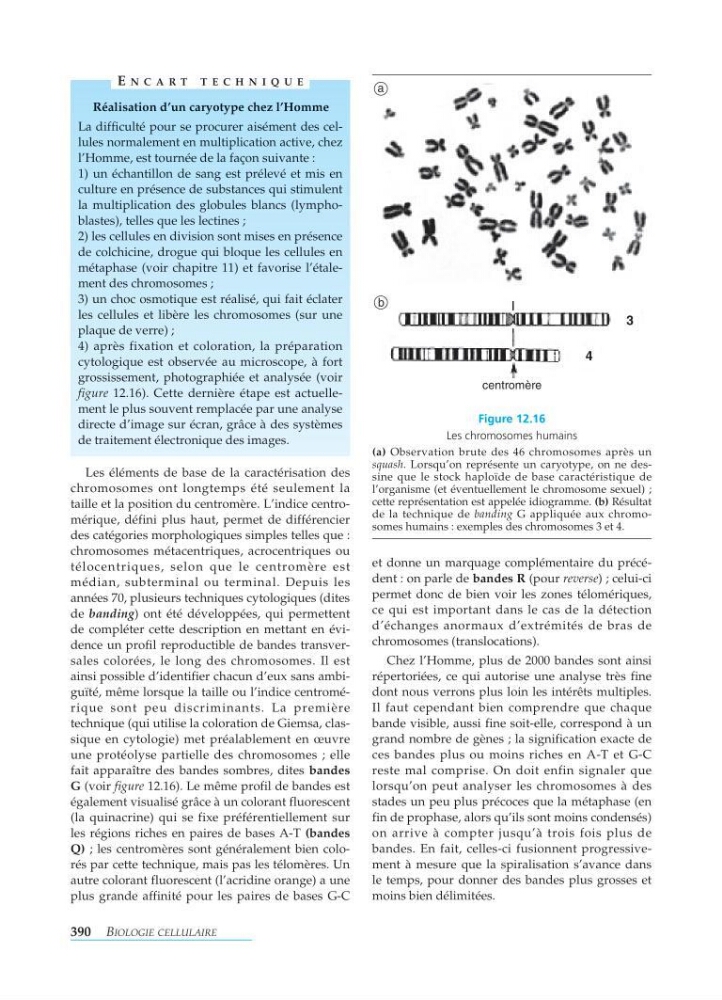
G (voir figure 12.16). Le même profil de bandes est
également visualisé grâce à un colorant fluorescent
(la quinacrine) qui se fixe préférentiellement sur
les régions riches en paires de bases A-T (bandes
Q) ; les centromères sont généralement bien colorés par cette technique, mais pas les télomères. Un
autre colorant fluorescent (l’acridine orange) a une
plus grande affinité pour les paires de bases G-C
et donne un marquage complémentaire du précédent : on parle de bandes R (pour reverse) ; celui-ci
permet donc de bien voir les zones télomériques,
ce qui est important dans le cas de la détection
d’échanges anormaux d’extrémités de bras de
chromosomes (translocations).
Chez l’Homme, plus de 2000 bandes sont ainsi
répertoriées, ce qui autorise une analyse très fine
dont nous verrons plus loin les intérêts multiples.
Il faut cependant bien comprendre que chaque
bande visible, aussi fine soit-elle, correspond à un
grand nombre de gènes ; la signification exacte de
ces bandes plus ou moins riches en A-T et G-C
reste mal comprise. On doit enfin signaler que
lorsqu’on peut analyser les chromosomes à des
stades un peu plus précoces que la métaphase (en
fin de prophase, alors qu’ils sont moins condensés)
on arrive à compter jusqu’à trois fois plus de
bandes. En fait, celles-ci fusionnent progressivement à mesure que la spiralisation s’avance dans
le temps, pour donner des bandes plus grosses et
moins bien délimitées.
390 B IOLOGIE CELLULAIRE
Réalisation d’un caryotype chez l’Homme
La difficulté pour se procurer aisément des cellules normalement en multiplication active, chez
l’Homme, est tournée de la façon suivante :
1) un échantillon de sang est prélevé et mis en
culture en présence de substances qui stimulent
la multiplication des globules blancs (lymphoblastes), telles que les lectines ;
2) les cellules en division sont mises en présence
de colchicine, drogue qui bloque les cellules en
métaphase (voir chapitre 11) et favorise l’étalement des chromosomes ;
3) un choc osmotique est réalisé, qui fait éclater
les cellules et libère les chromosomes (sur une
plaque de verre) ;
4) après fixation et coloration, la préparation
cytologique est observée au microscope, à fort
grossissement, photographiée et analysée (voir
figure 12.16). Cette dernière étape est actuellement le plus souvent remplacée par une analyse
directe d’image sur écran, grâce à des systèmes
de traitement électronique des images.
E NCARTT ECHNIQUE
Figure 12.16
Les chromosomes humains
(a) Observation brute des 46 chromosomes après un
squash. Lorsqu’on représente un caryotype, on ne dessine que le stock haploïde de base caractéristique de
l’organisme (et éventuellement le chromosome sexuel) ;
cette représentation est appelée idiogramme. (b) Résultat
de la technique de banding G appliquée aux chromosomes humains : exemples des chromosomes 3 et 4.
centromère
a
b
3
4