

380 B IOLOGIE CELLULAIRE
4.1.2. U LTRASTRUCTURE ET ARCHITECTURE
MOLÉCULAIRE DES CHROMOSOMES
MÉTAPHASIQUES
La condensation des chromatides en fin de prophase correspond à un enroulement hélicoïdal,
visible en microscopie optique dans quelques cas
particuliers (voir figure 12.9). La microscopie à
balayage (voir chapitre 2) montre, à la surface des
chromosomes métaphasiques, une multitude de
protubérances ovoïdes plus ou moins allongées,
dont l’épaisseur est voisine de 60 nm. Quand les
chromosomes sont légèrement désorganisés par
une déprotéinisation partielle, l’architecture de ces
structures est plus visible : ce traitement fait apparaître, à leur place, de courtes boucles constituées
d’une fibre épaisse de 30 nm. Or, on sait que la fibre
élémentaire de nucléosomes s’organise au sein de
la chromatine en une superstructure hélicoïdale de
30 nm de diamètre (modèle en solénoïde stabilisé
par l’histone H1 ; voir chapitre 8). C’est donc probablement le même niveau de condensation de
l’ADN qui existe dans la chromatine et dans le
chromosome métaphasique.
Les chromosomes peuvent être totalement
désorganisés par élimination complète des histones, puis étalés sur des grilles de microscopie
électronique. On observe alors une sorte de squelette axial fibreux dont la taille et la forme correspondent à peu près à celles des chromosomes de
départ, et d’où émergent des milliers de boucles
enchevêtrées d’ADN, ayant de 15 à 30 µ m de long.
La zone axiale qui résiste au traitement est constituée de protéines non-histones. Le modèle d’organisation du chromosome métaphasique est
actuellement le suivant : autour d’un axe protéique épais ayant un rôle de squelette rigide, des
boucles constituées d’une fibre de 30 nm pelotonnée sur elle-même sont disposées en une hélice
continue. Ces boucles sont pontées à leur base et
stabilisées par des protéines. On passe ainsi progressivement d’une structure linéaire extrêmement longue (la fibre de 11 nm) à une structure
très courte et compacte, grâce à une série de
niveaux d’organisation superposés.
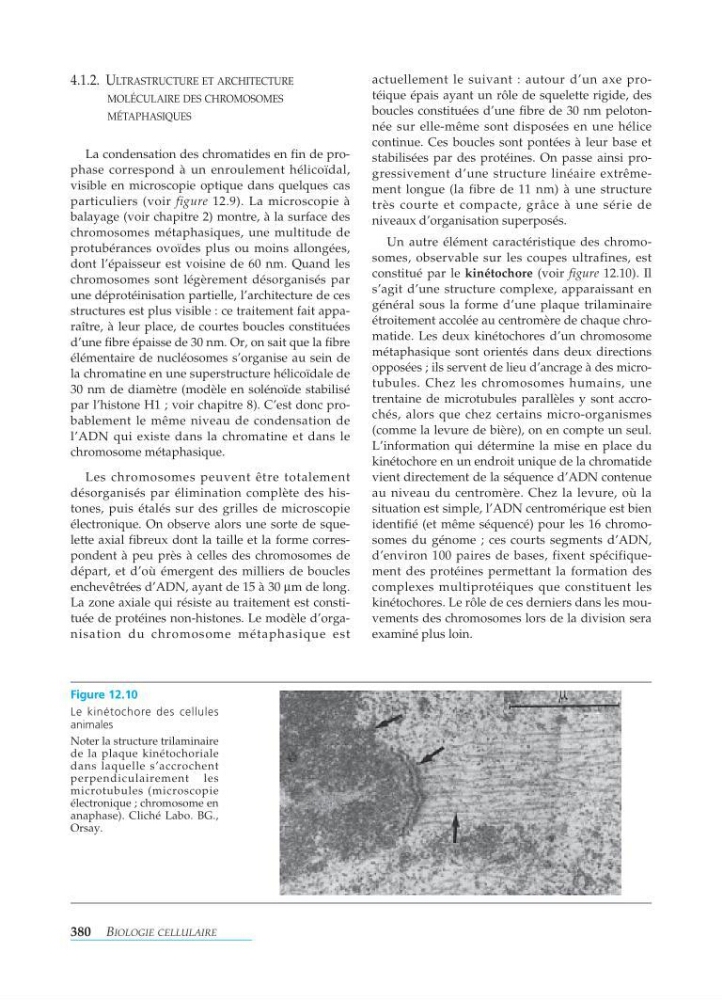
Un autre élément caractéristique des chromosomes, observable sur les coupes ultrafines, est
constitué par le kinétochore (voir figure 12.10). Il
s’agit d’une structure complexe, apparaissant en
général sous la forme d’une plaque trilaminaire
étroitement accolée au centromère de chaque chromatide. Les deux kinétochores d’un chromosome
métaphasique sont orientés dans deux directions
opposées ; ils servent de lieu d’ancrage à des microtubules. Chez les chromosomes humains, une
trentaine de microtubules parallèles y sont accrochés, alors que chez certains micro-organismes
(comme la levure de bière), on en compte un seul.
L’information qui détermine la mise en place du
kinétochore en un endroit unique de la chromatide
vient directement de la séquence d’ADN contenue
au niveau du centromère. Chez la levure, où la
situation est simple, l’ADN centromérique est bien
identifié (et même séquencé) pour les 16 chromosomes du génome ; ces courts segments d’ADN,
d’environ 100 paires de bases, fixent spécifiquement des protéines permettant la formation des
complexes multiprotéiques que constituent les
kinétochores. Le rôle de ces derniers dans les mouvements des chromosomes lors de la division sera
examiné plus loin.
Figure 12.10
Le kinétochore des cellules
animales
Noter la structure trilaminaire
de la plaque kinétochoriale
dans laquelle s’accrochent
perpendiculairement les
microtubules (microscopie
électronique ; chromosome en
anaphase). Cliché Labo. BG.,
Orsay.