

12. P ROLIFÉRATION DES CELLULES.A SPECTS MOLÉCULAIRES ET CELLULAIRES DE LA DIVISION 367
© Dunod – La photocopie non autorisée est un délit.
système semi-conservatif ; on devrait donc observer une variation continue de la densité de l’ADN
au cours du temps, allant régulièrement de «lourd
vers léger». Dans cette expérience, l’existence des
molécules de densité intermédiaire dès la génération 1 permet d’éliminer le modèle conservatif,
tandis que l’existence de molécules entièrement
légères, apparaissant à la génération 2, et se maintenant par la suite, permet d’éliminer le modèle
dispersif.
2.2. Allongement des chaînes
polynucléotidiques : polarisation
du processus de synthèse
Les travaux de A. K ORNBERG, dès 1958, ont montré qu’un extrait acellulaire de E. coli pouvait provoquer in vitro la polymérisation des quatre
désoxyribonucléotides triphosphates (dATP,
dCTP, dGTP, dTTP : dNTP) en ADN, à condition
que soit fournie au départ une certaine quantité
d’ADN agissant comme matrice. Les quatre
nucléotides étaient absolument indispensables, et
l’ADN synthétisé avait une composition moyenne
semblable à celle de l’ADN matrice. Ceci suggérait
qu’il ne s’agissait pas d’une élongation aléatoire
des brins fournis, mais bien d’un vrai recopiage,
d’une réplication. Les caractéristiques de la protéine responsable de la polymérisation : l’ADN
polymérase, sont les suivantes :
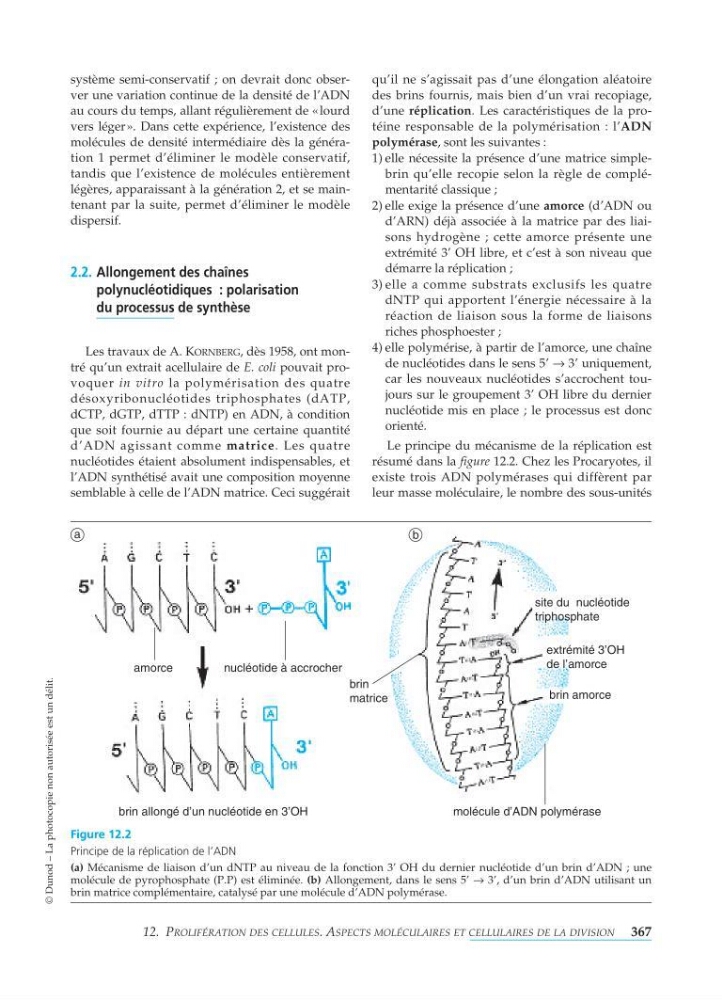
1) elle nécessite la présence d’une matrice simplebrin qu’elle recopie selon la règle de complémentarité classique ;
2) elle exige la présence d’une amorce (d’ADN ou
d’ARN) déjà associée à la matrice par des liaisons hydrogène ; cette amorce présente une
extrémité 3’ OH libre, et c’est à son niveau que
démarre la réplication ;
3) elle a comme substrats exclusifs les quatre
dNTP qui apportent l’énergie nécessaire à la
réaction de liaison sous la forme de liaisons
riches phosphoester ;
4) elle polymérise, à partir de l’amorce, une chaîne
de nucléotides dans le sens 5’ → 3’ uniquement,
car les nouveaux nucléotides s’accrochent toujours sur le groupement 3’ OH libre du dernier
nucléotide mis en place ; le processus est donc
orienté.
Le principe du mécanisme de la réplication est
résumé dans la figure 12.2. Chez les Procaryotes, il
existe trois ADN polymérases qui diffèrent par
leur masse moléculaire, le nombre des sous-unités
amorce
brin
matrice
brin amorce
extrémité 3’OH
de l’amorce
site du nucléotide
triphosphate
molécule d’ADN polymérase
nucléotide à accrocher
brin allongé d’un nucléotide en 3’OH
a
b
Figure 12.2
Principe de la réplication de l’ADN
(a) Mécanisme de liaison d’un dNTP au niveau de la fonction 3’ OH du dernier nucléotide d’un brin d’ADN ; une
molécule de pyrophosphate (P.P) est éliminée. (b) Allongement, dans le sens 5’ → 3’, d’un brin d’ADN utilisant un
brin matrice complémentaire, catalysé par une molécule d’ADN polymérase.