

366 B IOLOGIE CELLULAIRE
une position correspondant à une densité de
1,724 g.cm
–3
(ADN lourd), alors qu’un ADN
témoin de même origine biologique aurait une
densité de 1,710 g.cm
–3
(ADN léger).
Sur la base de cette possibilité de distinguer
aisément différents ADN, les auteurs ont construit
le protocole suivant : des Bactéries cultivées pendant de nombreuses générations en présence de
15
N, sont rapidement transférées (après lavage)
dans un milieu de culture normal, contenant des
sels d’azote
14
N. La culture est poursuivie pendant
un temps tel que trois générations puissent se
dérouler (soit environ 90 min, à 37°C). Au cours de
cette période de chasse, des échantillons de cellules sont prélevés à des moments successifs, leur
ADN est extrait et analysé sur gradient de CsCl.
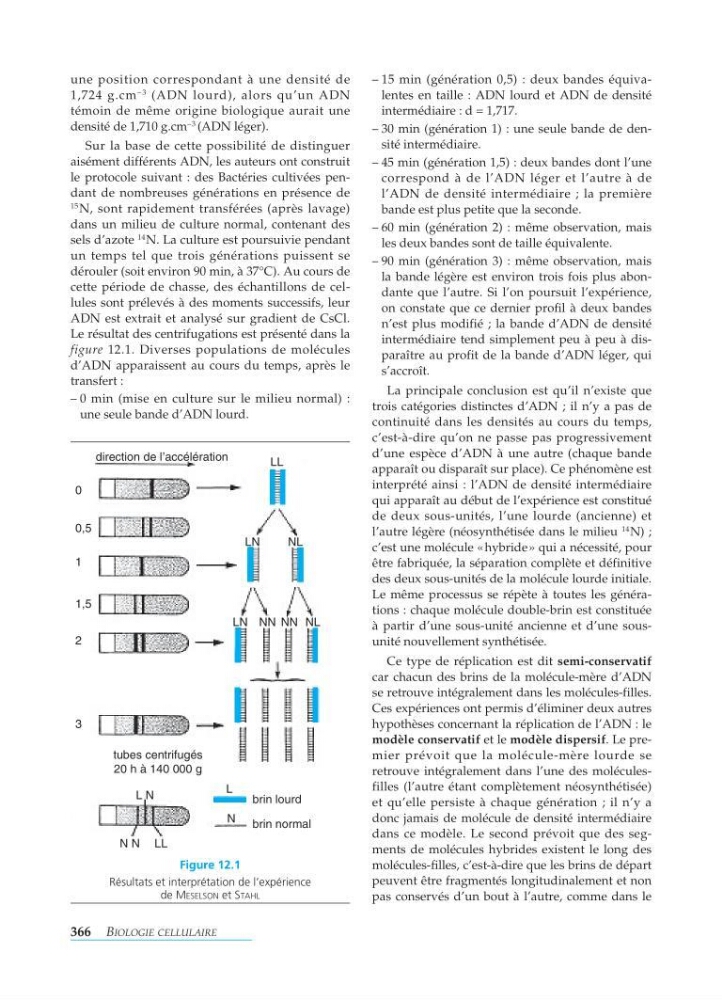
Le résultat des centrifugations est présenté dans la
figure 12.1. Diverses populations de molécules
d’ADN apparaissent au cours du temps, après le
transfert :
–0 min (mise en culture sur le milieu normal) :
une seule bande d’ADN lourd.
–15m in (génération 0,5) : deux bandes équivalentes en taille : ADN lourd et ADN de densité
intermédiaire : d=1,717.
–30m in (génération 1) : une seule bande de densité intermédiaire.
–45m in (génération 1,5) : deux bandes dont l’une
correspond à de l’ADN léger et l’autre à de
l’ADN de densité intermédiaire ; la première
bande est plus petite que la seconde.
–60m in (génération 2) : même observation, mais
les deux bandes sont de taille équivalente.
–90m in (génération 3) : même observation, mais
la bande légère est environ trois fois plus abondante que l’autre. Si l’on poursuit l’expérience,
on constate que ce dernier profil à deux bandes
n’est plus modifié;la bande d’ADN de densité
intermédiaire tend simplement peu à peu à disparaître au profit de la bande d’ADN léger, qui
s’accroît.
La principale conclusion est qu’il n’existe que
trois catégories distinctes d’ADN ; il n’y a pas de
continuité dans les densités au cours du temps,
c’est-à-dire qu’on ne passe pas progressivement
d’une espèce d’ADN à une autre (chaque bande
apparaît ou disparaît sur place). Ce phénomène est
interprété ainsi : l’ADN de densité intermédiaire
qui apparaît au début de l’expérience est constitué
de deux sous-unités, l’une lourde (ancienne) et
l’autre légère (néosynthétisée dans le milieu
14
N) ;
c’est une molécule «hybride » qui a nécessité, pour
être fabriquée, la séparation complète et définitive
des deux sous-unités de la molécule lourde initiale.
Le même processus se répète à toutes les générations : chaque molécule double-brin est constituée
à partir d’une sous-unité ancienne et d’une sousunité nouvellement synthétisée.
Ce type de réplication est dit semi-conservatif
car chacun des brins de la molécule-mère d’ADN
se retrouve intégralement dans les molécules-filles.
Ces expériences ont permis d’éliminer deux autres
hypothèses concernant la réplication de l’ADN : le
modèle conservatif et le modèle dispersif. Le premier prévoit que la molécule-mère lourde se
retrouve intégralement dans l’une des moléculesfilles (l’autre étant complètement néosynthétisée)
et qu’elle persiste à chaque génération ; il n’y a
donc jamais de molécule de densité intermédiaire
dans ce modèle. Le second prévoit que des segments de molécules hybrides existent le long des
molécules-filles, c’est-à-dire que les brins de départ
peuvent être fragmentés longitudinalement et non
pas conservés d’un bout à l’autre, comme dans le
Figure 12.1
Résultats et interprétation de l’expérience
de M ESELSON et S TAHL
brin lourd
brin normal
tubes centrifugés
20 h à 140 000 g
direction de l’accélération
LN
L
N
NN LL
LL
LN
LN NN NN NL
NL
0
0,5
1
1,5
2
3