

11. A RCHITECTURE ET MOTILITÉ CELLULAIRES 345
© Dunod – La photocopie non autorisée est un délit.
3.3.3. I MPORTANCE ARCHITECTURALE DES FILAMENTS
INTERMÉDIAIRES
Les filaments intermédiaires sont surtout abondants dans les cellules animales différenciées et ne
se divisant plus ; ils sont absents des cellules
embryonnaires ou des cellules en culture en prolifération rapide. Quelques rares types cellulaires
n’en possèdent d’ailleurs pas (érythrocytes des
Mammifères ; certaines cellules gliales du système
nerveux central). Dans les cellules où on les trouve,
ils constituent des édifices toujours en rapport
avec une grande solidité mécanique (rôle d’armature ou d’échafaudage) ; leur rôle est donc essentiellement statique et structural.
• Dans les dérivés ectodermiques des Vertébrés
(épiderme et phanères), les cellules accumulent de
grandes quantités de fibres de kératine qui s’associent progressivement entre elles par des liaisons
covalentes ; ces cellules se déshydratent, s’aplatissent et meurent tandis que leur squelette kératinisé
persiste. Repoussées vers la partie superficielle de
la peau par des cellules plus jeunes issues de cellules-souches, elles seront éliminées par desquamation ; l’empilement de plusieurs dizaines de ces
cellules mortes constitue une couche protectrice
imperméable et résistante, qui recouvre tout l’animal. Les cheveux, les ongles, les plumes, les griffes,
les sabots, sont des formations épidermiques
constituées elles aussi de kératines. On connaît
plusieurs dizaines de formes, légèrement différentes, de ces molécules ; elles sont codées par des
gènes distincts appartenant à une même famille
multigénique. L’expression différentielle de ces
gènes dans les divers tissus d’un même organisme
conduit à une large palette de spécialisations
structurales et fonctionnelles.
• Au sein des cellules, les filaments intermédiaires sont toujours en rapport avec des jonctions
intercellulaires particulières. Dans les cellules épithéliales, par exemple, les faisceaux de tonofilaments de kératine traversent les cellules de part
en part ou longent la membrane plasmique, puis
convergent vers les desmosomes ponctuels qui
accrochent les cellules épithéliales les unes aux
autres ; de même, les hémidesmosomes ancrent
ces cellules dans la matrice extracellulaire (voir
chapitre 14). Tout en organisant à l’évidence
l’architecture de ces cellules, les tonofilaments
assurent, via les desmosomes, une continuité entre
les réseaux des cellules voisines ; on obtient ainsi
une structure continue (dite transcellulaire) conférant à l’ensemble du feuillet épithélial des propriétés à la fois élastiques et résistantes.
• Dans les prolongements des neurones, les
neurofilaments contribuent, en formant des faisceaux serrés appelés neurofibrilles, à leur architecture filiforme très particulière ; ceux-ci peuvent
ainsi atteindre des tailles extraordinaires pour des
cellules (plusieurs dizaines de centimètres !). Il
faut évidemment mettre ce fait en relation avec
leur fonction spécialisée de conduction à distance
d’un signal électrique.
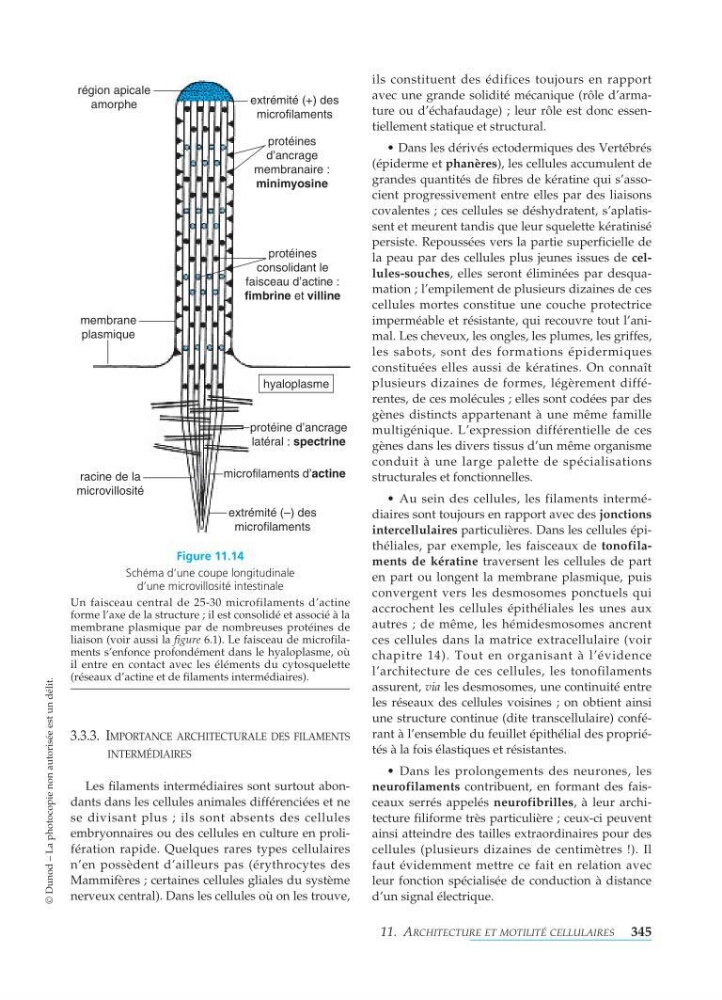
Figure 11.14
Schéma d’une coupe longitudinale
d’une microvillosité intestinale
Un faisceau central de 25-30 microfilaments d’actine
forme l’axe de la structure ; il est consolidé et associé à la
membrane plasmique par de nombreuses protéines de
liaison (voir aussi la figure 6.1). Le faisceau de microfilaments s’enfonce profondément dans le hyaloplasme, où
il entre en contact avec les éléments du cytosquelette
(réseaux d’actine et de filaments intermédiaires).
région apicale
amorphe
extrémité (+) des
microfilaments
extrémité (–) des
microfilaments
hyaloplasme
protéines
d’ancrage
membranaire :
minimyosine
protéine d’ancrage
latéral : spectrine
racine de la
microvillosité
membrane
plasmique
microfilaments d’actine
protéines
consolidant le
faisceau d’actine :
fimbrine et villine