

2.3.1. D IVERSITÉ DES PROTÉINES CONSTITUTIVES
ET SPÉCIFICITÉ TISSULAIRE
On distingue six grands groupes de monomères
présentant une plus ou moins grande spécificité
tissulaire :
–les kératines (40 à 70 kDa), parmi lesquelles on
distingue les «acides » et les «neutres-basiques »;
elles sont spécifiques des cellules épithéliales et
des dérivés épidermiques (phanères) chez les
Vertébrés ;
–la vimentine (55 kDa), spécifique des cellules
d’origine mésenchymateuse : fibroblastes, adipocytes, cellules endothéliales ;
–la desmine (53 kDa), spécifique des cellules musculaires lisses, cardiaques ou striées ;
–les protéines des neurofilaments, au nombre de
3 (70, 150 et 210 kDa), spécifiques des neurones ;
–la protéine dite fibrillaire gliale acide (48 kDa),
spécifique de certaines cellules gliales du système nerveux ;
–les lamines nucléaires, au nombre de 3 (6570 kDa), que l’on trouve dans la lamina du noyau
de toutes les cellules animales.
L’organisation moléculaire de ces différents
monomères est commune à toutes les familles
citées : ce sont des protéines fibreuses, linéaires,
possédant une zone centrale de 40 à 50 nm de long
organisée en hélice α rigide. Les domaines N et C
terminaux sont de taille variable suivant le type et
ils sont organisés de façon plus ou moins globulaire. Certains types cellulaires peuvent exprimer
en même temps deux familles de protéines de filaments intermédiaires : kératine et vimentine (cas
de quelques cellules épithéliales en culture ; voir
plus loin), ou bien desmine et vimentine.
2.3.2. A UTOASSEMBLAGE DES FILAMENTS
INTERMÉDIAIRES
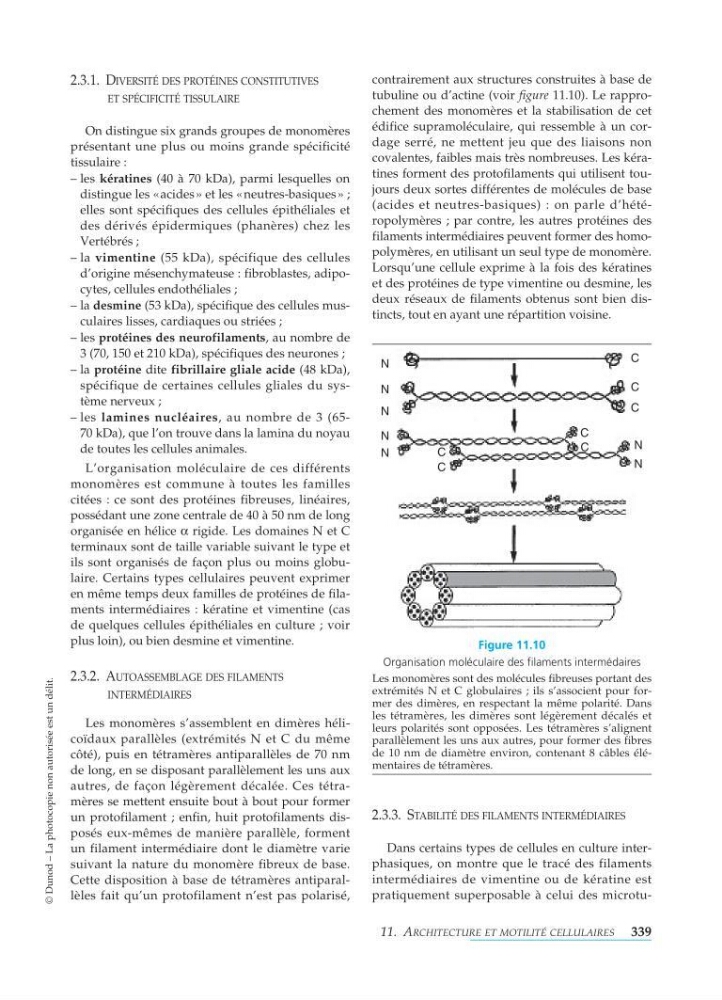
Les monomères s’assemblent en dimères hélicoïdaux parallèles (extrémités N et C du même
côté), puis en tétramères antiparallèles de 70 nm
de long, en se disposant parallèlement les uns aux
autres, de façon légèrement décalée. Ces tétramères se mettent ensuite bout à bout pour former
un protofilament ; enfin, huit protofilaments disposés eux-mêmes de manière parallèle, forment
un filament intermédiaire dont le diamètre varie
suivant la nature du monomère fibreux de base.
Cette disposition à base de tétramères antiparallèles fait qu’un protofilament n’est pas polarisé,
contrairement aux structures construites à base de
tubuline ou d’actine (voir figure 11.10). Le rapprochement des monomères et la stabilisation de cet
édifice supramoléculaire, qui ressemble à un cordage serré, ne mettent jeu que des liaisons non
covalentes, faibles mais très nombreuses. Les kératines forment des protofilaments qui utilisent toujours deux sortes différentes de molécules de base
(acides et neutres-basiques) : on parle d’hétéropolymères ; par contre, les autres protéines des
filaments intermédiaires peuvent former des homopolymères, en utilisant un seul type de monomère.
Lorsqu’une cellule exprime à la fois des kératines
et des protéines de type vimentine ou desmine, les
deux réseaux de filaments obtenus sont bien distincts, tout en ayant une répartition voisine.
2.3.3. S TABILITÉ DES FILAMENTS INTERMÉDIAIRES
Dans certains types de cellules en culture interphasiques, on montre que le tracé des filaments
intermédiaires de vimentine ou de kératine est
pratiquement superposable à celui des microtu11. A RCHITECTURE ET MOTILITÉ CELLULAIRES 339
© Dunod – La photocopie non autorisée est un délit.
Figure 11.10
Organisation moléculaire des filaments intermédaires
Les monomères sont des molécules fibreuses portant des
extrémités N et C globulaires ; ils s’associent pour former des dimères, en respectant la même polarité. Dans
les tétramères, les dimères sont légèrement décalés et
leurs polarités sont opposées. Les tétramères s’alignent
parallèlement les uns aux autres, pour former des fibres
de 10 nm de diamètre environ, contenant 8c âbles élémentaires de tétramères.
N
N
N
N
N
N
N
C
C
C
C
C
C
C