

Vertébrés et les Champignons ; comme pour la
tubuline, cette conservation témoigne des
contraintes fortes qui président à la constuction
des microfilaments. Chez les organismes complexes
il existe, dans les différents tissus d’un même individu, plusieurs formes très voisines de cette molécule ; celles-ci sont codées par une famille de gènes
répétés, descendant par duplication d’un gène
ancestral. On compte, par exemple, au moins six
formes d’actine distinctes chez les Oiseaux et les
Mammifères, et chez certains Végétaux supérieurs,
plus de 60 gènes ont été identifiés.
2.2.2. A UTOASSEMBLAGE DES MICROFILAMENTS.
P ROPRIÉTÉS DYNAMIQUES
De même que la tubuline, l’actine purifiée en
solution est spontanément capable de s’associer
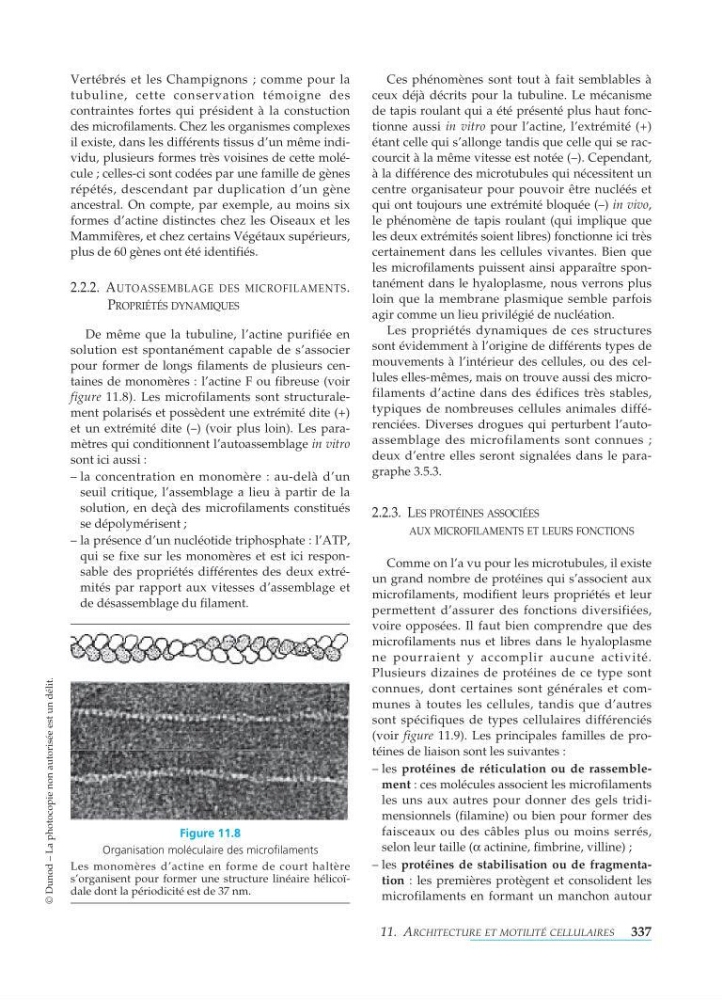
pour former de longs filaments de plusieurs centaines de monomères : l’actine F ou fibreuse (voir
figure 11.8). Les microfilaments sont structuralement polarisés et possèdent une extrémité dite (+)
et un extrémité dite (–) (voir plus loin). Les paramètres qui conditionnent l’autoassemblage in vitro
sont ici aussi :
–la concentration en monomère : au-delà d’un
seuil critique, l’assemblage a lieu à partir de la
solution, en deçà des microfilaments constitués
se dépolymérisent ;
–la présence d’un nucléotide triphosphate : l’ATP,
qui se fixe sur les monomères et est ici responsable des propriétés différentes des deux extrémités par rapport aux vitesses d’assemblage et
de désassemblage du filament.
Ces phénomènes sont tout à fait semblables à
ceux déjà décrits pour la tubuline. Le mécanisme
de tapis roulant qui a été présenté plus haut fonctionne aussi in vitro pour l’actine, l’extrémité (+)
étant celle qui s’allonge tandis que celle qui se raccourcit à la même vitesse est notée (–). Cependant,
à la différence des microtubules qui nécessitent un
centre organisateur pour pouvoir être nucléés et
qui ont toujours une extrémité bloquée (–) in vivo,
le phénomène de tapis roulant (qui implique que
les deux extrémités soient libres) fonctionne ici très
certainement dans les cellules vivantes. Bien que
les microfilaments puissent ainsi apparaître spontanément dans le hyaloplasme, nous verrons plus
loin que la membrane plasmique semble parfois
agir comme un lieu privilégié de nucléation.
Les propriétés dynamiques de ces structures
sont évidemment à l’origine de différents types de
mouvements à l’intérieur des cellules, ou des cellules elles-mêmes, mais on trouve aussi des microfilaments d’actine dans des édifices très stables,
typiques de nombreuses cellules animales différenciées. Diverses drogues qui perturbent l’autoassemblage des microfilaments sont connues ;
deux d’entre elles seront signalées dans le paragraphe 3.5.3.
2.2.3. L ES PROTÉINES ASSOCIÉES
AUX MICROFILAMENTS ET LEURS FONCTIONS
Comme on l’a vu pour les microtubules, il existe
un grand nombre de protéines qui s’associent aux
microfilaments, modifient leurs propriétés et leur
permettent d’assurer des fonctions diversifiées,
voire opposées. Il faut bien comprendre que des
microfilaments nus et libres dans le hyaloplasme
ne pourraient y accomplir aucune activité.
Plusieurs dizaines de protéines de ce type sont
connues, dont certaines sont générales et communes à toutes les cellules, tandis que d’autres
sont spécifiques de types cellulaires différenciés
(voir figure 11.9). Les principales familles de protéines de liaison sont les suivantes :
–les protéines de réticulation ou de rassemblement : ces molécules associent les microfilaments
les uns aux autres pour donner des gels tridimensionnels (filamine) ou bien pour former des
faisceaux ou des câbles plus ou moins serrés,
selon leur taille ( α actinine, fimbrine, villine) ;
–les protéines de stabilisation ou de fragmentation : les premières protègent et consolident les
microfilaments en formant un manchon autour
11. A RCHITECTURE ET MOTILITÉ CELLULAIRES 337
© Dunod – La photocopie non autorisée est un délit.
Figure 11.8
Organisation moléculaire des microfilaments
Les monomères d’actine en forme de court haltère
s’organisent pour former une structure linéaire hélicoïdale dont la périodicité est de 37 nm.