

11. A RCHITECTURE ET MOTILITÉ CELLULAIRES 333
© Dunod – La photocopie non autorisée est un délit.
examine des Protistes du groupe des Ciliés, on est
frappé par la richesse de leur cytoplasme en structures construites à partir de microtubules ; nous
illustrerons ce point dans le paragraphe 3.2.
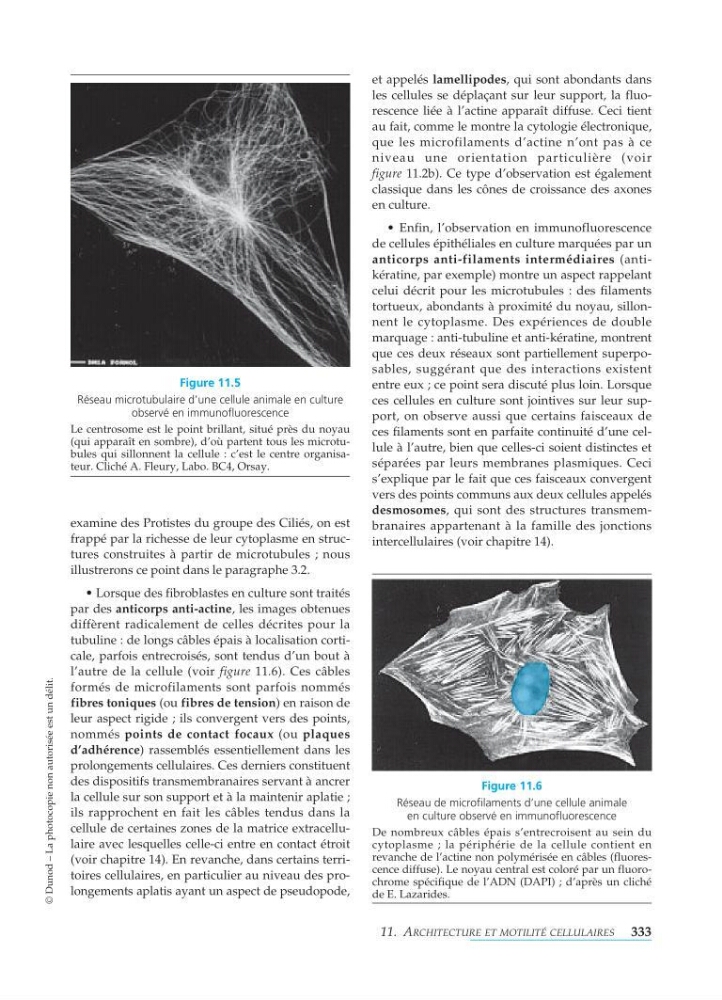
• Lorsque des fibroblastes en culture sont traités
par des anticorps anti-actine, les images obtenues
diffèrent radicalement de celles décrites pour la
tubuline : de longs câbles épais à localisation corticale, parfois entrecroisés, sont tendus d’un bout à
l’autre de la cellule (voir figure 11. 6). Ces câbles
formés de microfilaments sont parfois nommés
fibres toniques (ou fibres de tension) en raison de
leur aspect rigide ; ils convergent vers des points,
nommés points de contact focaux (ou plaques
d’adhérence) rassemblés essentiellement dans les
prolongements cellulaires. Ces derniers constituent
des dispositifs transmembranaires servant à ancrer
la cellule sur son support et à la maintenir aplatie ;
ils rapprochent en fait les câbles tendus dans la
cellule de certaines zones de la matrice extracellulaire avec lesquelles celle-ci entre en contact étroit
(voir chapitre 14). En revanche, dans certains territoires cellulaires, en particulier au niveau des prolongements aplatis ayant un aspect de pseudopode,
et appelés lamellipodes , qui sont abondants dans
les cellules se déplaçant sur leur support, la fluorescence liée à l’actine apparaît diffuse. Ceci tient
au fait, comme le montre la cytologie électronique,
que les microfilaments d’actine n’ont pas à ce
niveau une orientation particulière (voir
figure 11.2b). Ce type d’observation est également
classique dans les cônes de croissance des axones
en culture.
• Enfin, l’observation en immunofluorescence
de cellules épithéliales en culture marquées par un
anticorps anti-filaments intermédiaires (antikératine, par exemple) montre un aspect rappelant
celui décrit pour les microtubules : des filaments
tortueux, abondants à proximité du noyau, sillonnent le cytoplasme. Des expériences de double
marquage : anti-tubuline et anti-kératine, montrent
que ces deux réseaux sont partiellement superposables, suggérant que des interactions existent
entre eux ; ce point sera discuté plus loin. Lorsque
ces cellules en culture sont jointives sur leur support, on observe aussi que certains faisceaux de
ces filaments sont en parfaite continuité d’une cellule à l’autre, bien que celles-ci soient distinctes et
séparées par leurs membranes plasmiques. Ceci
s’explique par le fait que ces faisceaux convergent
vers des points communs aux deux cellules appelés
desmosomes, qui sont des structures transmembranaires appartenant à la famille des jonctions
intercellulaires (voir chapitre 14).
Figure 11.6
Réseau de microfilaments d’une cellule animale
en culture observé en immunofluorescence
De nombreux câbles épais s’entrecroisent au sein du
cytoplasme ; la périphérie de la cellule contient en
revanche de l’actine non polymérisée en câbles (fluorescence diffuse). Le noyau central est coloré par un fluorochrome spécifique de l’ADN (DAPI) ; d’après un cliché
de E. Lazarides.
Figure 11.5
Réseau microtubulaire d’une cellule animale en culture
observé en immunofluorescence
Le centrosome est le point brillant, situé près du noyau
(qui apparaît en sombre), d’où partent tous les microtubules qui sillonnent la cellule : c’est le centre organisateur. Cliché A. Fleury, Labo. BC4, Orsay.