

10. C ONVERSION DE L ' ÉNERGIE : MITOCHONDRIES ET CHLOROPLASTES.L ES P EROXYSOMES 321
© Dunod – La photocopie non autorisée est un délit.
lier de transport des acides gras a déjà fait l’objet
d’un développement spécifique dans ce chapitre.
Il existe enfin une autre façon pour les mitochondries de faire pénétrer certains métabolites : c’est le
système dit des navettes.
4.2.2. N AV ETTES
En conditions anaérobies, le NADH produit par
la glycolyse se réoxyde en cédant ses électrons au
pyruvate pour donner soit de l’éthanol, soit du
lactate. Lorsque l’oxygène est présent, les processus respiratoires assurent la réoxydation des coenzymes réduits produits au sein des mitochondries ;
mais qu’advient-il de ceux qui sont produits dans
le hyaloplasme par la glycolyse, en l’absence de
régénération fermentaire ? Les coenzymes ne peuvent pas traverser la membrane mitochondriale
interne, comme le montre l’expérience suivante : si
on ajoute du NADH à une suspension de mitochondries isolées, il n’est pas oxydé bien que ces
mêmes organites soient capables de métaboliser et
d’oxyder rapidement des substrats nécessitant ce
coenzyme précis (le malate ou le citrate, par exemple). Les cellules disposent en fait de systèmes permettant de récupérer le pouvoir réducteur produit
dans le hyaloplasme afin de l’oxyder au sein des
mitochondries : il s’agit de ce qu’on appelle les
navettes. La plus simple d’entre elles est la navette
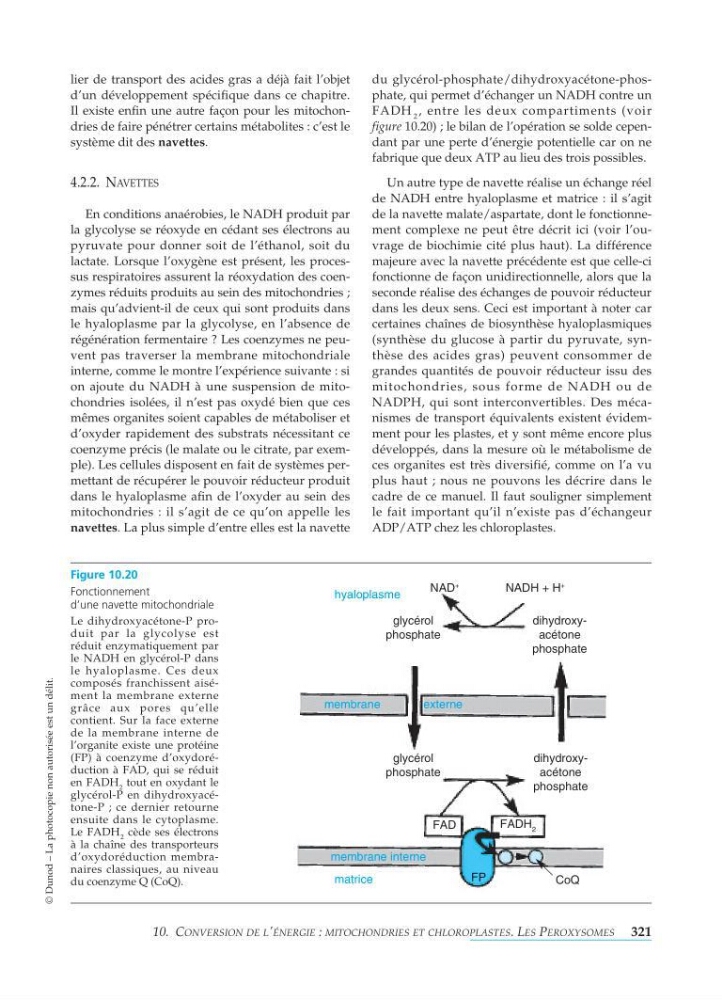
du glycérol-phosphate/dihydroxyacétone-phosphate, qui permet d’échanger un NADH contre un
FADH 2 , entre les deux compartiments (voir
figure 10.20) ; le bilan de l’opération se solde cependant par une perte d’énergie potentielle car on ne
fabrique que deux ATP au lieu des trois possibles.
Un autre type de navette réalise un échange réel
de NADH entre hyaloplasme et matrice : il s’agit
de la navette malate/aspartate, dont le fonctionnement complexe ne peut être décrit ici (voir l’ouvrage de biochimie cité plus haut). La différence
majeure avec la navette précédente est que celle-ci
fonctionne de façon unidirectionnelle, alors que la
seconde réalise des échanges de pouvoir réducteur
dans les deux sens. Ceci est important à noter car
certaines chaînes de biosynthèse hyaloplasmiques
(synthèse du glucose à partir du pyruvate, synthèse des acides gras) peuvent consommer de
grandes quantités de pouvoir réducteur issu des
mitochondries, sous forme de NADH ou de
NADPH, qui sont interconvertibles. Des mécanismes de transport équivalents existent évidemment pour les plastes, et y sont même encore plus
développés, dans la mesure où le métabolisme de
ces organites est très diversifié, comme on l’a vu
plus haut ; nous ne pouvons les décrire dans le
cadre de ce manuel. Il faut souligner simplement
le fait important qu’il n’existe pas d’échangeur
ADP/ATP chez les chloroplastes.
Figure 10.20
Fonctionnement
d’une navette mitochondriale
Le dihydroxyacétone-P produit par la glycolyse est
réduit enzymatiquement par
le NADH en glycérol-P dans
le hyaloplasme. Ces deux
composés franchissent aisément la membrane externe
grâce aux pores qu’elle
contient. Sur la face externe
de la membrane interne de
l’organite existe une protéine
(FP) à coenzyme d’oxydoréduction à FAD, qui se réduit
en FADH 2 tout en oxydant le
glycérol-P en dihydroxyacétone-P ; ce dernier retourne
ensuite dans le cytoplasme.
Le FADH 2 cède ses électrons
à la chaîne des transporteurs
d’oxydoréduction membranaires classiques, au niveau
du coenzyme Q(CoQ).
hyaloplasme
matrice
membrane
membrane interne
externe
NAD
+
FAD
CoQ
FP
FADH 2
glycérol
phosphate
glycérol
phosphate
dihydroxyacétone
phosphate
dihydroxyacétone
phosphate
NADH + H
+