

destinations. Nous analyserons en détail les mécanismes mis en œuvre pour aiguiller des protéines
vers le noyau, les mitochondries et les plastes ; le
routage vers les peroxysomes étant basé sur des
mécanismes très voisins de ceux présentés pour
ces derniers ne sera pas traité ici.
5.2. Routage des protéines vers le noyau
Le compartiment nucléaire fait l’objet d’échanges
nombreux avec le hyaloplasme :
– importation de protéines intervenant dans les
activités nucléaires : réplication et transcription ;
il s’agit des polymérases variées (ARN et ADN
polymérases), des histones et autres protéines
structurant la chromatine, des protéines de
maturation des transcrits, des protéines de régulation de l’expression des gènes… ;
– exportation de particules ribonucléoprotéiques
intervenant dans l’expression du matériel génétique : ARN messagers complexés à des protéines,
ARN de transfert, sous-unités ribosomiques…
Seul le volet «importation » sera examiné dans
ce chapitre ; comme pour tous les autres organites,
celle-ci doit être très spécifique et exclure des milliers d’espèces moléculaires qui sont synthétisées
et restent localisées dans le hyaloplasme.
5.2.1. M ISE EN ÉVIDENCE EXPÉRIMENTALE
DE TRANSPORTS SPÉCIFIQUES VERS LE NOYAU
Le matériel biologique initialement utilisé pour
ce genre d’études a été l’ovocyte d’Amphibien ; il
est possible de micro-injecter de façon contrôlée,
dans cette cellule géante, des composés soit dans
le hyaloplasme, soit directement dans le noyau.
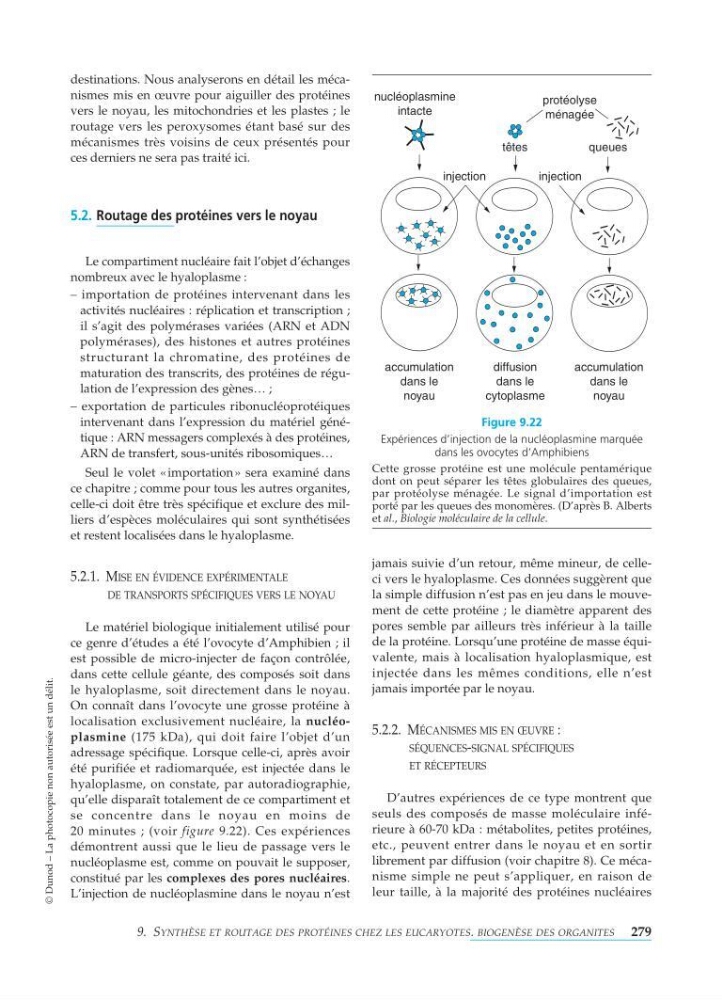
On connaît dans l’ovocyte une grosse protéine à
localisation exclusivement nucléaire, la nucléoplasmine (175 kDa), qui doit faire l’objet d’un
adressage spécifique. Lorsque celle-ci, après avoir
été purifiée et radiomarquée, est injectée dans le
hyaloplasme, on constate, par autoradiographie,
qu’elle disparaît totalement de ce compartiment et
se concentre dans le noyau en moins de
20 minutes ; (voir figure 9.22). Ces expériences
démontrent aussi que le lieu de passage vers le
nucléoplasme est, comme on pouvait le supposer,
constitué par les complexes des pores nucléaires.
L’injection de nucléoplasmine dans le noyau n’est
jamais suivie d’un retour, même mineur, de celleci vers le hyaloplasme. Ces données suggèrent que
la simple diffusion n’est pas en jeu dans le mouvement de cette protéine ; le diamètre apparent des
pores semble par ailleurs très inférieur à la taille
de la protéine. Lorsqu’une protéine de masse équivalente, mais à localisation hyaloplasmique, est
injectée dans les mêmes conditions, elle n’est
jamais importée par le noyau.
5.2.2. M ÉCANISMES MIS EN ŒUVRE :
SÉQUENCES- SIGNAL SPÉCIFIQUES
ET RÉCEPTEURS
D’autres expériences de ce type montrent que
seuls des composés de masse moléculaire inférieure à 60-70 kDa : métabolites, petites protéines,
etc., peuvent entrer dans le noyau et en sortir
librement par diffusion (voir chapitre 8). Ce mécanisme simple ne peut s’appliquer, en raison de
leur taille, à la majorité des protéines nucléaires
9. S YNTHÈ SE ET ROUTAGE DES PROTÉINES CHEZ LES EUCARYOTES. BIOGENÈ SE DES ORGANITES 279
© Dunod – La photocopie non autorisée est un délit.
nucléoplasmine
intacte
protéolyse
ménagée
injection
injection
accumulation
dans le
noyau
diffusion
dans le
cytoplasme
accumulation
dans le
noyau
têtes
queues
Figure 9.22
Expériences d’injection de la nucléoplasmine marquée
dans les ovocytes d’Amphibiens
Cette grosse protéine est une molécule pentamérique
dont on peut séparer les têtes globulaires des queues,
par protéolyse ménagée. Le signal d’importation est
porté par les queues des monomères. (D’après B. Alberts
et al., Biologie moléculaire de la cellule.